技术分享:揭示协调线粒体运输方向的分子开关
膜结合细胞器是由驱动蛋白(kinesin)和细胞质动力蛋白(dynein)沿微管进行运输。在大多数细胞中,微管的负端锚定在靠近细胞中心的中心体上,正端则朝向细胞外周。多数细胞器表现为双向运输,既有驱动蛋白驱动的正端方向运动(顺行),又有动力蛋白驱动的负端方向运动(逆行)[1]。特定细胞器在细胞中的分布是由这两种马达蛋白的相对活性所决定。已知线粒体倾向于以驱动蛋白或动力蛋白的最大速度顺行或逆行。表明驱动蛋白和动力蛋白并非持续性的相互对抗,可能存在协调这两种马达结合和/或活性的机制。
线粒体是双向细胞器运输中研究最为透彻的实例。由驱动蛋白-1介导的线粒体运输支持了能量需求旺盛的细胞周边生理过程,如细胞的向外生长和突触活动[2]。而由动力蛋白介导的中心体方向运输则是受损线粒体更新所必需的[3]。TRAK是一种多功能马达衔接蛋白,能够招募驱动蛋白-1和动力蛋白,并通过外膜受体Miro在内的多个相互作用伙伴与线粒体结合[4, 5]。脊椎动物有两个TRAK基因TRAK1和TRAK2,均能同等有效地结合动力蛋白-动力蛋白激活蛋白(dynactin)复合物。然而,TRAK1对驱动蛋白的亲和力远高于TRAK2。在海马神经元中,TRAK1优先将货物运输至轴突,而TRAK2则主要驱动向树突的运输[6]。先前的细胞研究还发现,TRAK介导的运输可响应不同信号的调节,例如细胞周期状态、葡萄糖可用性、活性氧(ROS)以及ATP/AMP比值[7, 8]。然而,关于这两种TRAK之间的差异、及其如何在驱动蛋白与动力蛋白运输之间进行切换,以及这种切换如何受胞内信号影响,目前仍知之甚少。
2026年8月,Science期刊报道了一项研究,鉴定出线粒体衔接蛋白TRAK存在一个动力蛋白调节螺旋(DRH),介导了动力蛋白与驱动蛋白运输之间的切换。DRH充当连接线粒体与马达蛋白的“分子开关”。当DRH处于闭合状态时,阻止动力蛋白结合,并允许驱动蛋白与TRAK结合,促使线粒体向细胞周边方向运输;当DRH处于开放状态时,允许动力蛋白与TRAK结合,驱动线粒体向细胞中心运输。应激激活的激酶可对DRH进行磷酸化修饰,诱导了动力蛋白的激活和驱动蛋白的解离。该研究揭示了一种响应胞内信号来协调线粒体定向运输的分子机制,为理解细胞极性、应激反应及神经退行性疾病的病理机制提供了全新的思路[9]。
线粒体与肌动蛋白、微管及其他细胞器之间存在着复杂的相互作用,加上自身的裂变与融合动力学,使得在细胞内分离和研究基于微管的马达蛋白调控充满了挑战[10]。为模拟基于微管的线粒体运输,研究者利用一种工程化蛋白(I3-01),该蛋白可自组装成约25 nm的正十二面体纳米笼[11],将I3-01与Miro1的胞质结构域融合,构建合成线粒体货物,以实现纳米笼与基于微管的线粒体运输机制相偶联,其中Miro1是TRAK的线粒体受体。为实现合成线粒体货物的可视化或免疫沉淀,分别将荧光标签和FLAG标签融合至I3-01(图一A和B)。
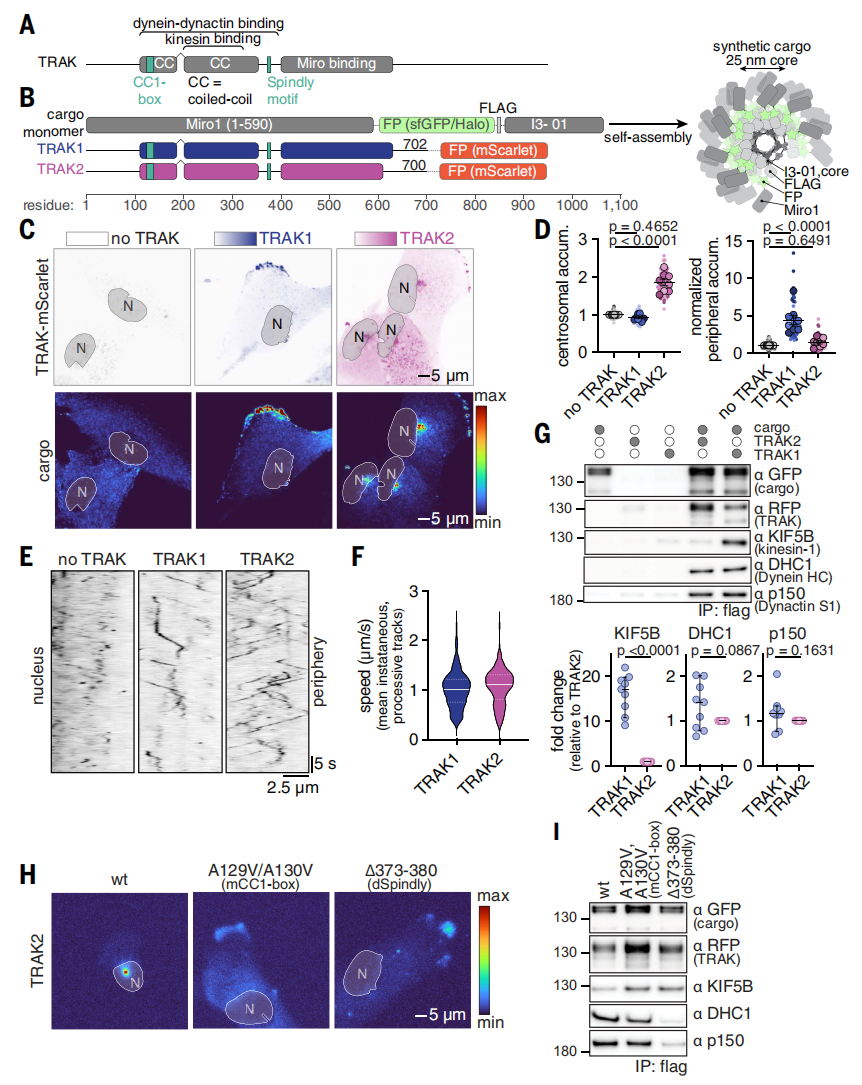
图一 基于微管运输的合成线粒体货物[9]
当在永生化视网膜色素上皮(RPE-1)细胞中表达时,携带超折叠绿色荧光蛋白(sfGFP)标记的合成线粒体货物均匀分布于整个细胞质中,表明内源性TRAK不足以支持其高效运输(图一C)。然而,共表达TRAK1或TRAK2可导致货物发生微管依赖性的重新定位(图一C和D)。共表达TRAK1-mScarlet导致货物在细胞周边区域积累(图一C和D),与驱动蛋白驱动的顺行运输一致。相比之下,共表达TRAK2-mScarlet导致货物主要积累在核周区域(图一C和D),与动力蛋白驱动的逆行运输一致。对于TRAK2,部分细胞同时表现出核周和周边的积累(图一C),表明存在双向运输,尽管周边积累在群体水平上无统计学显著性(图一D)。用与HaloTag偶联的光激活JF-646染料进行标记,合成货物显示出定向运输,其速率与体内驱动蛋白和动力蛋白介导的线粒体运输报道速率[12]相近(图一E和F)。与先前研究相一致,驱动蛋白在TRAK1货物中的富集程度约为TRAK2的20倍,而动力蛋白和dynactin的水平在两者中相当(图一G)。
TRAK通过保守的基序与动力蛋白相互作用,包括与动力蛋白轻中间链(LIC)相互作用的CC1-box,与动力蛋白激活蛋白(dynactin)结合的Spindly基序、以及在活性马达复合物中夹在动力蛋白和dynactin之间的长卷曲螺旋结构域(CC)。TRAK的CC也能直接结合驱动蛋白-1(图一A)。为了解析TRAK介导的动力蛋白激活所需条件,研究者分别突变了与动力蛋白LIC和dynactin相互作用的保守CC1-box和Spindly基序。对于TRAK2,两种突变体均降低了动力蛋白活性,并将货物运输从双向转变为以驱动蛋白驱动为主(图一H)。然而,尽管Spindly基序突变削弱了TRAK2与动力蛋白和dynactin的相互作用,但CC1-box突变体中这两种马达组分仍保持关联(图一I)。类似地,对于TRAK1,Spindly基序突变体消除了与动力蛋白-dynactin的结合,而CC1-box突变体则未受影响。以上结果表明,TRAK2能够在驱动蛋白和动力蛋白介导的运输之间进行切换;动力蛋白活性通常占主导地位,但当动力蛋白活性降低时,驱动蛋白会接管运输。相比之下,TRAK1是一种驱动蛋白转运体,携带的动力蛋白-dynactin处于无活性状态。TRAK衔接蛋白中的Spindly基序是动力蛋白-dynactin结合所必需的,而LIC与CC1-box的额外结合则是激活动力蛋白运动性所必需的。
为了更好地理解马达蛋白与TRAK的结合,研究者采用AlphaFold2进行结构预测。结果显示,驱动蛋白的C端卷曲螺旋结构域(CC4,氨基酸820-923)与TRAK卷曲螺旋的C端部分(氨基酸205-260)形成一个四螺旋束(图二A)。AlphaFold2还预测,TRAK N端的一个螺旋结构(氨基酸85-106)会折叠回来并与TRAK卷曲螺旋的CC1-box区域相互作用,形成一个四螺旋束(图二A)。这一相互作用很特别,它模拟了动力蛋白LIC与BICD2动力蛋白衔接蛋白的CC1-box区域在晶体结构中[13]形成的疏水界面(图二B)。为了验证N端螺旋是否参与马达蛋白调控,研究者构建了嵌合蛋白,将这些螺旋区域(氨基酸81-106)在TRAK1和TRAK2之间互换。结果显示,这些嵌合蛋白的运输方向由折回螺旋的来源(TRAK1或TRAK2)所决定,而非由亲本多肽的剩余主体决定(图二C和D)。尽管将TRAK2的螺旋区域替换为TRAK1序列后驱动蛋白活性大幅增加(图二D),但驱动蛋白的结合并未恢复至野生型TRAK1的水平。这一结果提示,折回螺旋主要影响动力蛋白活性,而非驱动蛋白。
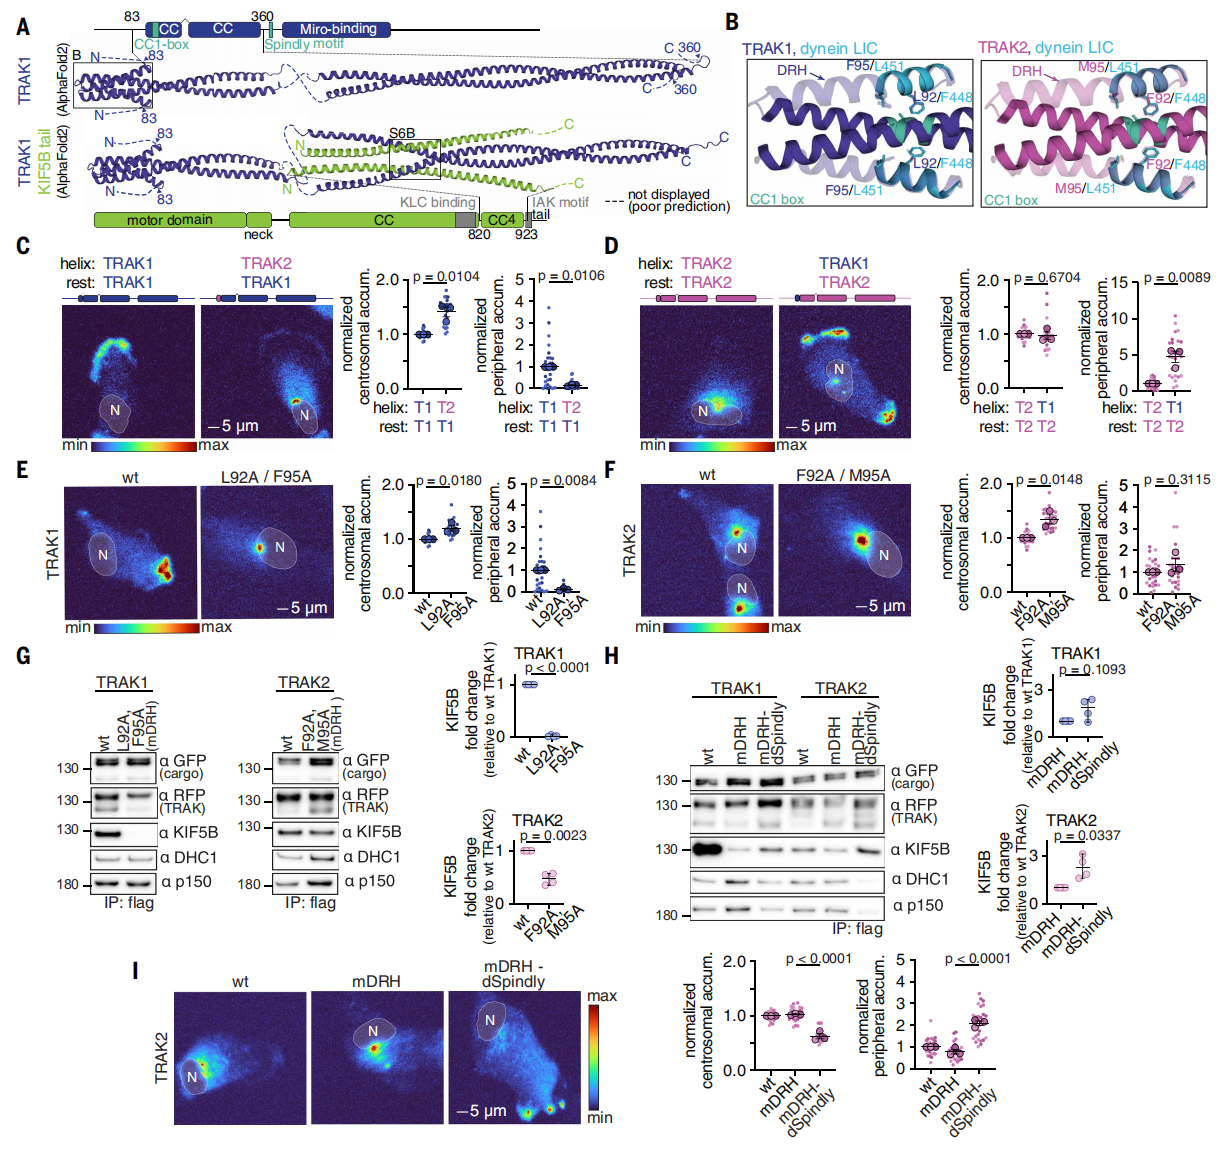
图二 AlphaFold2预测TRAK与马达蛋白的相互作用[9]
为了研究TRAK的N端螺旋如何调节马达活性,研究者对两个关键疏水残基突变为丙氨酸,TRAK1为F95A和L92A,TRAK2为M95A和F92A。突变体使得TRAK1的货物积累从周边区域转变为核周区域(图二E),并在TRAK2中维持了核周积累(图二F),表明动力蛋白激活需要折回螺旋从“闭合”构象到“开放”构象的结构重排,从而允许动力蛋白LIC与CC1-box结合。鉴于其在调节动力蛋白活性中的作用,研究者将该区域命名为“动力蛋白调节螺旋”(DRH)。DRH突变体还降低了TRAK与驱动蛋白的结合(图二G),这提出了一个可能性:螺旋开放后动力蛋白的激活可能不利于驱动蛋白的结合。为了验证这一点,在DRH突变体TRAK中引入了额外的Spindly box突变,该突变可消除动力蛋白-dynactin的结合(图一I)。在TRAK2中,与DRH突变体相比,DRH-Spindly双突变体导致更多的驱动蛋白结合(图二H)和运输(图二I),这与动力蛋白-dynactin激活拮抗驱动蛋白结合的观点一致。在TRAK1中,DRH-Spindly双突变体对驱动蛋白运输的影响较弱,与单独的DRH突变体相比,驱动蛋白结合仅适度增加,且未能将驱动蛋白结合恢复至野生型TRAK1的水平(图二H)。以上结果表明,动力蛋白的激活需要折回螺旋从闭合构象重排为开放构象,从而允许动力蛋白LIC与CC1-box结合,激活动力蛋白并促进驱动蛋白的解离,且实验表明这种切换机制不涉及Miro1线粒体受体。
为进一步探索DRH是否受到生理性调控,研究者使用质谱技术鉴定了与合成货物共免疫沉淀的TRAK翻译后修饰位点。在TRAK2的翻译后修饰位点中,S84尤为突出,该保守残基紧邻DRH上游(图三A和B)。在TRAK1中,对应的T84残基未检测到磷酸化。为了研究S84磷酸化在TRAK2介导运输中的作用,构建了S84A突变体以阻断磷酸化,以及带负电荷的S84E突变体作为潜在的磷酸化模拟物。AlphaFold2建模显示,S84E替代降低了DRH闭合构象的预测置信度。在合成货物运输实验中,与野生型TRAK2和S84E突变体相比,TRAK2 S84A减少了向中心体的动力蛋白运输(图三C),结合了更多的驱动蛋白(图三D),尽管这一效应并未转化为周边积累的增加(图三C)。相比之下,TRAK1的T84E和T84A突变体均未显著改变货物定位,表明T84磷酸化并不调节TRAK1介导的运输。
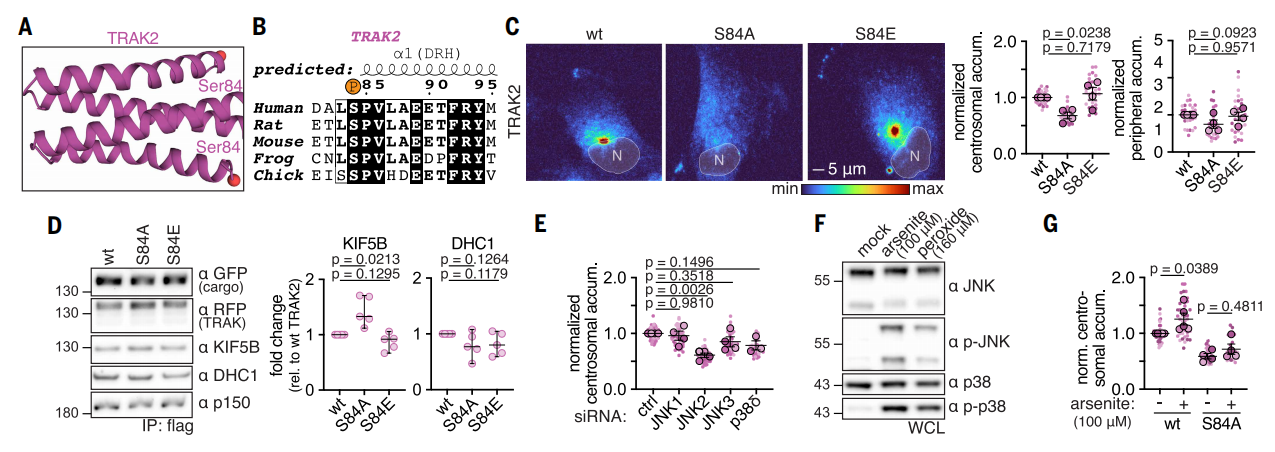
图三 应激诱导的TRAK2磷酸化激活了动力蛋白[9]
S84周围的序列与应激激活的丝裂原活化蛋白(MAP)激酶c-Jun N端激酶1(JNK1)至JNK3及p38δ的保守识别基序相匹配[14]。通过RNAi分别耗竭这类激酶,来验证是否参与激活TRAK2介导的动力蛋白活性。在测试的几种应激激活的激酶中,JNK2耗竭导致中心体积累的减弱最为显著(图三E)。接下来测试氧化应激能否激活动力蛋白运动性。采用一种氧化应激诱导剂亚砷酸盐,可激活JNK和p38 MAP激酶(图三F),并导致TRAK2驱动的货物向核周聚集(图三G)。相比之下,TRAK2 S84A突变体在氧化应激下未显示动力蛋白运输的显著增加(图三G)。以上结果表明,氧化应激诱导了DRH磷酸化,进而激活动力蛋白的运输。
为探究TRAK介导的天然细胞器的马达调控,研究者在图案化纤连蛋白基质上培养的细胞中测量线粒体的定位[15]。这些细胞具有均匀的形状和极性,为定量周边定位与中心体定位提供了可重复的实验体系(图四A和B)。在TRAK1或TRAK2存在下合成货物的定位,分别用于定义这些极化细胞中的周边区域和中心体区域(图四B和C)。与合成货物类似,表达TRAK1使线粒体分布向周边偏移,而表达TRAK2则导致线粒体向中心体聚集(图四A和B)。相比之下,过氧化物酶体在TRAK1或TRAK2表达时分布未发生变化。进一步研究DRH对线粒体分布的影响。与合成货物类似,对于TRAK1,DRH开放突变体导致线粒体定位从周边变为中心体聚集(图四D),而对于TRAK2,该突变体仍维持了中心体聚集(图四E)。为了研究动力蛋白与驱动蛋白在线粒体运输中的竞争关系,使用DRH-Spindly双突变体来减少动力蛋白结合。与单独的DRH突变体相比,DRH-Spindly双突变体促进了TRAK2而非TRAK1的驱动蛋白线粒体运输优于动力蛋白(图四D和E)。为验证JNK2介导的信号是否在氧化应激条件下促进线粒体的中心体聚集,用亚砷酸盐处理对照和JNK2耗竭细胞。在对照细胞中,亚砷酸盐导致线粒体在周边区域减少并在中心体区域积累,而这种效应在JNK2耗竭细胞中减弱(图四F)。单独的JNK2耗竭对线粒体分布无显著影响(图四F)。以上数据表明,通过合成货物检测揭示的TRAK DRH协调微管马达运输的机制,同样调控着线粒体的分布。
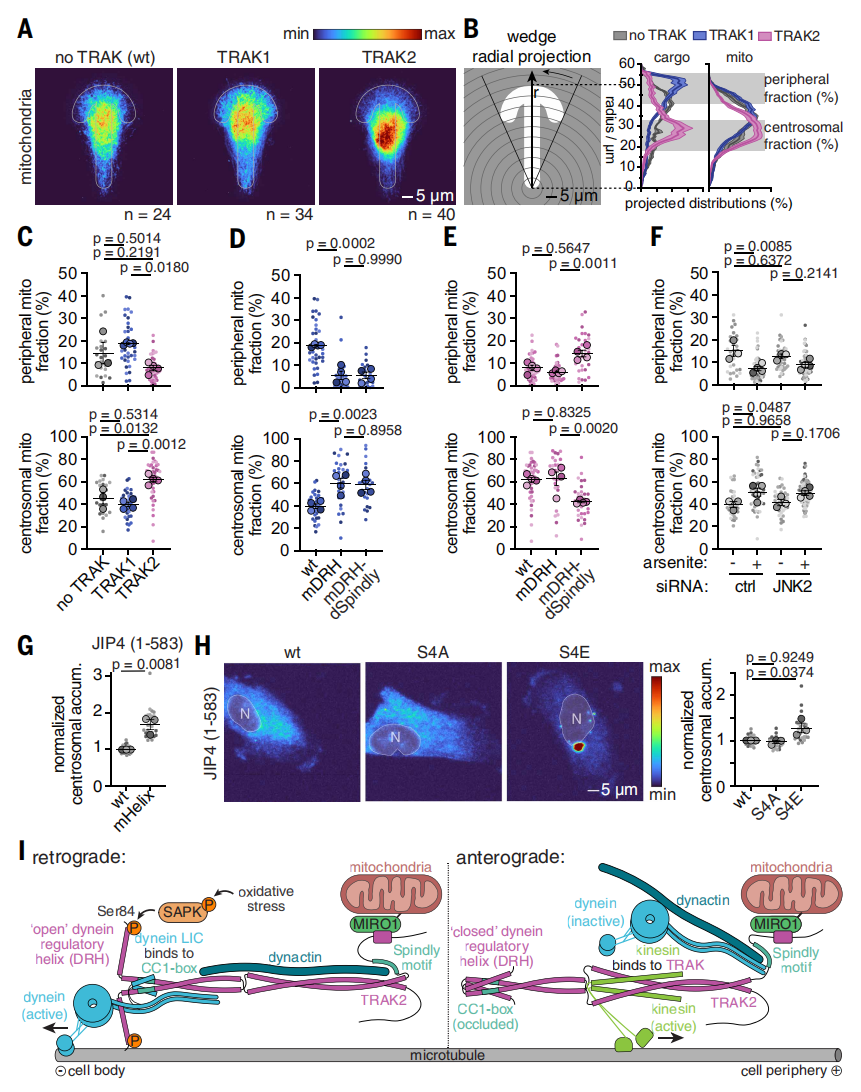
图四 TRAK介导的动力蛋白调控线粒体的分布[9]
最后,研究者测试在脊椎动物TRAK中发现的DRH调控开关机制是否也存在于其他动力蛋白衔接蛋白。JIP3和JIP4是两种溶酶体衔接蛋白,既能结合动力蛋白也能结合驱动蛋白,并具有推定的自抑制螺旋[16]。利用合成货物实验,发现突变JIP3中阻止动力蛋白LIC结合的自抑制残基以及JIP4中的类似残基(图四G)会导致核周积累,表明动力蛋白被激活。JIP3和JIP4的自抑制螺旋之后均有一段保守的丝氨酸残基序列,据报道这些残基可被磷酸化。将这些丝氨酸残基突变为磷酸化模拟物谷氨酸可强烈激活JIP4介导的动力蛋白运输(图四H),但对JIP3无此效果。以上结果表明,与TRAK2类似,JIP4的动力蛋白运输可能受到一种激酶的调控,该激酶可对自抑制螺旋邻近的残基进行磷酸化。
综上所述,该研究利用细胞内的“合成线粒体货物运输实验”和AlphaFold2结构预测与突变分析,在线粒体接头蛋白TRAK上找到了一个关键的动力蛋白调节螺旋DRH,可充当连接线粒体与马达蛋白的“分子开关”,驱动线粒体运动的方向转换(图四I)。当DRH折叠闭合时,阻止了动力蛋白LIC的结合,并允许驱动蛋白结合TRAK的螺旋卷曲结构域,促进线粒体进行顺向运输(图四I右)。应激激活的激酶会磷酸化DRH,使DRH构象发生变化,处于开放状态,动力蛋白被激活,驱动蛋白被解离,线粒体转为逆向运输(图四I左)。这一螺旋序列的差异解释了为何两种几乎完全相同的TRAK异构体能以基本相反的方向来运输线粒体。该研究定义了DRH作为衔接蛋白通用马达切换开关的角色,可整合细胞状态的多种信号,将其转化为马达蛋白的激活和细胞器的重新分布,为神经退行性疾病等线粒体运输相关疾病提供了新的研究靶点。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:多一百
新媒体运营:suway
参考文献
1. Cason SE, Holzbaur ELF: Selective motor activation in organelle transport along axons. Nature reviews Molecular cell biology 2022, 23(11):699-714.
2. Zhao Y, Song E, Wang W, Hsieh CH, Wang X, Feng W, Wang X, Shen K: Metaxins are core components of mitochondrial transport adaptor complexes. Nature communications 2021, 12(1):83.
3. Mandal A, Wong HC, Pinter K, Mosqueda N, Beirl A, Lomash RM, Won S, Kindt KS, Drerup CM: Retrograde Mitochondrial Transport Is Essential for Organelle Distribution and Health in Zebrafish Neurons. J Neurosci 2021, 41(7):1371-1392.
4. Glater EE, Megeath LJ, Stowers RS, Schwarz TL: Axonal transport of mitochondria requires milton to recruit kinesin heavy chain and is light chain independent. The Journal of cell biology 2006, 173(4):545-557.
5. Mitchell L, Reda KE, Fatima H, Vasquez CE, Quintero-Carmona OA: The C-Terminal Regions of TRAK Proteins Contain MIRO-Independent Mitochondrial Localization Domains. Cytoskeleton (Hoboken, NJ) 2026, 83(4):187-199.
6. Loss O, Stephenson FA: Developmental changes in trak-mediated mitochondrial transport in neurons. Molecular and cellular neurosciences 2017, 80:134-147.
7. Pekkurnaz G, Trinidad JC, Wang X, Kong D, Schwarz TL: Glucose regulates mitochondrial motility via Milton modification by O-GlcNAc transferase. Cell 2014, 158(1):54-68.
8. Debattisti V, Gerencser AA, Saotome M, Das S, Hajnóczky G: ROS Control Mitochondrial Motility through p38 and the Motor Adaptor Miro/Trak. Cell Rep 2017, 21(6):1667-1680.
9. Gladkova C, Paez-Segala MG, Grant WP, Kittisopikul M, Myers SA, Wang Y, Vale RD: A molecular switch for coordinating kinesin and dynein transport of mitochondrial cargo. Science 2026, 393(6811):601-606.
10. Misgeld T, Schwarz TL: Mitostasis in Neurons: Maintaining Mitochondria in an Extended Cellular Architecture. Neuron 2017, 96(3):651-666.
11. Hsia Y, Bale JB, Gonen S, Shi D, Sheffler W, Fong KK, Nattermann U, Xu C, Huang PS, Ravichandran R et al: Corrigendum: Design of a hyperstable 60-subunit protein icosahedron. Nature 2016, 540(7631):150.
12. MacAskill AF, Kittler JT: Control of mitochondrial transport and localization in neurons. Trends in cell biology 2010, 20(2):102-112.
13. Lee IG, Cason SE, Alqassim SS, Holzbaur ELF, Dominguez R: A tunable LIC1-adaptor interaction modulates dynein activity in a cargo-specific manner. Nature communications 2020, 11(1):5695.
14. Johnson JL, Yaron TM, Huntsman EM, Kerelsky A, Song J, Regev A, Lin T-Y, Liberatore K, Cizin DM, Cohen BM et al: An atlas of substrate specificities for the human serine/threonine kinome. Nature 2023, 613(7945):759-766.
15. Kanfer G, Courthéoux T, Peterka M, Meier S, Soste M, Melnik A, Reis K, Aspenström P, Peter M, Picotti P et al: Mitotic redistribution of the mitochondrial network by Miro and Cenp-F. Nature communications 2015, 6:8015.
16. Singh K, Lau CK, Manigrasso G, Gama JB, Gassmann R, Carter AP: Molecular mechanism of dynein-dynactin complex assembly by LIS1. Science 2024, 383(6690):eadk8544.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!