技术分享:SLC25A35调节线粒体PEP外流和甘油脂生成
线粒体是细胞内的代谢中枢,不仅提供了ATP,还为细胞核、内质网和脂滴等不同亚细胞区室提供必需的代谢物[1]。磷酸烯醇式丙酮酸(PEP)便是其中一种代谢物。它含有比ATP更高能的磷酸键,可水解为丙酮酸和无机磷酸,是多种代谢过程中一种多功能的能量供体,具有多种生物学功能。在糖酵解中,它通过丙酮酸激酶驱动ATP生成;在肝脏的糖异生中,PEP是必需的底物;而在甘油新生中,PEP被转化为3-磷酸甘油(G3P),后者是将脂肪酸酯化为甘油脂(包括脂肪组织和肝脏中的甘油三酯和磷脂)所必需的甘油骨架[2]。此外,PEP还参与胰腺β细胞中ATP依赖的胰岛素分泌,以及活化T细胞中Ca2+信号通路的调控[3, 4]。然而,这种在线粒体产生的高能分子是如何被运输到细胞质,并满足细胞类型特异性需求的,目前仍不清楚。
2026年5月,Cell期刊报道了一项研究,发现SLC25A35是线粒体磷酸烯醇式丙酮酸(PEP)的转运蛋白,调控线粒体生成的PEP外流和甘油生成。具体而言,脂肪细胞等生脂细胞依赖线粒体PCK2生成PEP,然后通过线粒体内膜载体SLC25A35将其输出到胞质,用于合成甘油-3-磷酸(G3P),且SLC25A35的转运活性受pH梯度调控。脂肪细胞缺失SLC25A35会损害线粒体PEP向G3P的转化,从而减少甘油脂的合成。在肥胖小鼠中抑制肝脏SLC25A35的表达,可减轻脂肪变性并改善全身性葡萄糖代谢稳态。该研究为理解能量代谢与脂代谢的整合提供了新范式,为治疗代谢性疾病如肝脂肪变性和2型糖尿病提供了以生脂线粒体为靶点限制甘油脂合成的靶向干预新策略[5]。
从丙酮酸再生具有高能量的磷酸烯醇式丙酮酸(PEP),细胞必须通过两步反应来克服能量障碍:第一步是消耗ATP的反应,由丙酮酸羧化酶(PCX)将丙酮酸转化为草酰乙酸(OAA);第二步是消耗三磷酸鸟苷(GTP)的反应,由PEP羧激酶(PEPCK)将OAA转化为PEP。值得注意的是,PEP既可以由胞质中的PEPCK(C-PEPCK 或 PCK1)从OAA合成,也可以由线粒体内的PCK2(也称为 M-PEPCK)合成(图一A)。在糖异生的背景下,PCK1在啮齿动物肝脏和肾脏中的丰度远高于PCK2,使得PCK1得到更多关注,认为PEP主要在细胞质中生成。但从生物能量学的角度来看,考虑到线粒体内GTP的可及性以及酶促步骤和代谢物转运需求较少,在线粒体区室内合成PEP似乎比胞质途径更为高效[6]。此外,线粒体中富含PEP,其浓度可达10 μM或更高。
当研究者在白色脂肪细胞分离的线粒体中进行13C3标记的丙酮酸示踪实验时,发现相对于M+1或M+2标记的PEP,M+3标记的PEP占据主导地位(图一B)。同样,来自棕色脂肪细胞的线粒体生成的M+3标记PEP水平也显著高于M+1或M+2标记的PEP(图一C)。表明无论脂肪细胞中线粒体的三羧酸循环(TCA)活性如何,丙酮酸→OAA→PEP这一转化路径,即丙酮酸–PEP旁路,都是脂肪细胞线粒体中PEP合成的主要途径。相比之下,C2C12成肌细胞和HEK293T细胞的线粒体通过TCA循环中丙酮酸的氧化产生M+1或M+2标记的PEP水平高于M+3标记的PEP,表明线粒体以细胞类型选择性的方式再生PEP。这就提出了一个关键问题:线粒体生成的PEP是如何被转运到细胞质区室的?由于线粒体内膜(IMM)对代谢物不通透,因此将PEP从线粒体基质转运到细胞质需要特定的线粒体载体蛋白的参与。
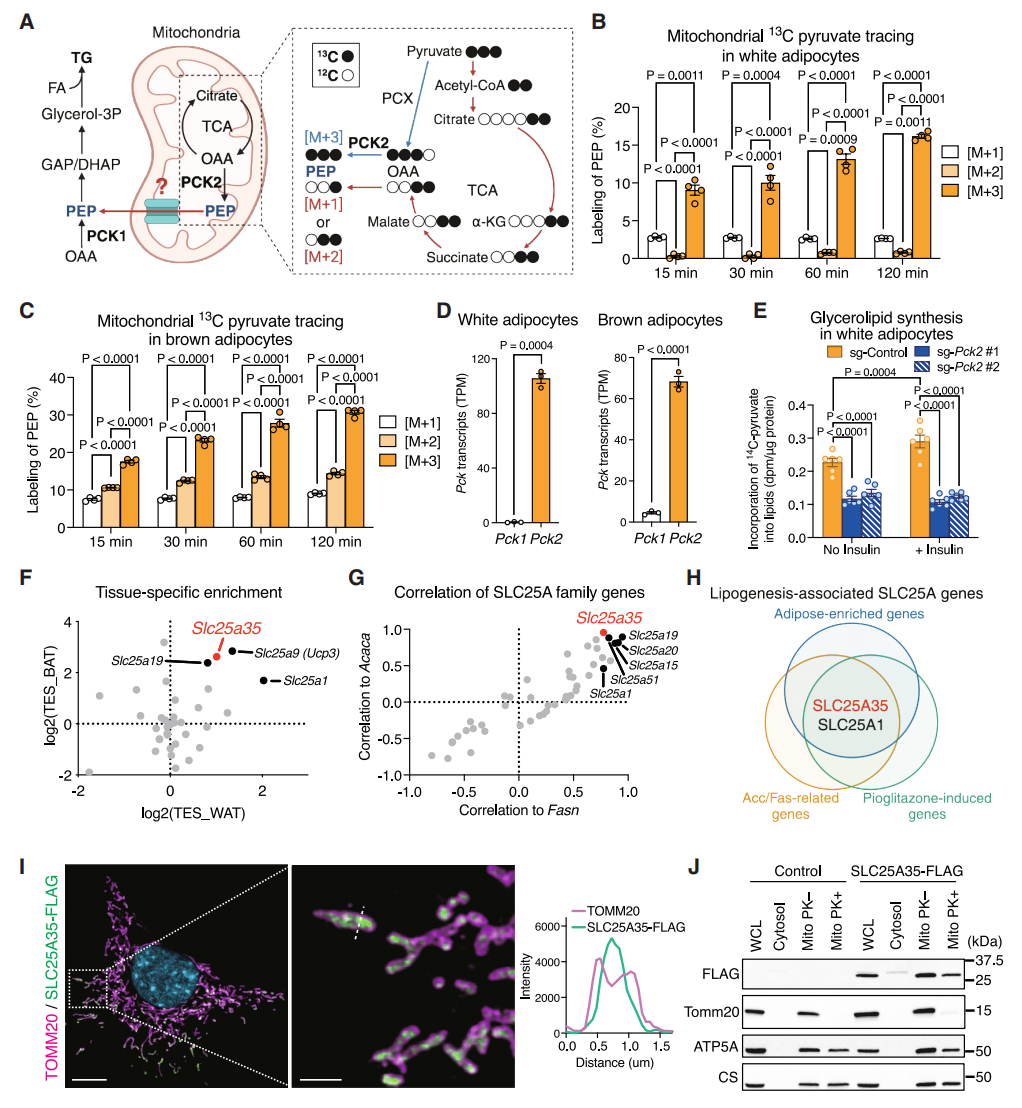
图一 鉴定与线粒体PEP合成相关的载体蛋白[5]
胞质中的PCK1一直被认为是主要的PEPCK。有趣的是,在腹股沟白色脂肪组织来源的脂肪细胞中,PCK2是主要的PEPCK,而PCK1的表达水平很低(图一D)。利用CRISPR-Cas9敲除Pck1或Pck2,检测其在脂肪生成中的功能。结果发现,相对于对照细胞,由两种sgRNA诱导的Pck2缺失脂肪细胞,甘油脂合成显著减少(图一E),表明由PCK2生成的线粒体PEP对脂肪细胞中的甘油脂合成有贡献,提示在这些细胞中存在一种尚未被鉴定的、介导PEP输出的线粒体载体。为了鉴定出这一载体,研究者进行了以下分析:其一,筛选在棕色和白色脂肪细胞中富集的编码线粒体载体蛋白的基因,包括线粒体柠檬酸载体Slc25a1、Slc25a9(也称为解偶联蛋白3 [UCP3])、硫胺素载体Slc25a19和Slc25a35(图一F)。其二,筛选与乙酰辅酶A羧化酶α(Acaca)和脂肪酸合酶(Fasn)这两个调控脂肪生成的代表性基因呈正相关的基因,包括Slc25a1、Slc25a15(鸟氨酸载体)、Slc25a19、Slc25a20(肉碱/酰基肉碱载体)、Slc25a35和Slc25a51(NAD载体,图一G)。其三,筛选在大鼠脂肪组织中受脂肪生成刺激物诱导表达的基因。鉴定出同时满足上述三项标准的SLC25A1和SLC25A35(图一H)。已知SLC25A1可输出柠檬酸[7],而SLC25A35是一种孤儿载体,在脂肪组织的脂肪细胞群中高表达。检测C末端带有FLAG标签的SLC25A35(SLC25A35-FLAG)的前脂肪细胞中SLC25A35的亚细胞定位。高分辨率显微镜显示,SLC25A35选择性表达在线粒体中,但与外膜标志物TOMM20定位不重叠(图一I)。用蛋白酶K处理可降解TOMM20,而SLC25A35和内膜定位蛋白ATP5A则保持完整(图一J),表明SLC25A35定位于线粒体内膜。以上数据表明,SLC25A35可能是与线粒体PEP合成相关的载体蛋白。
于是,研究者探究SLC25A35的生物学功能。利用一种基于单链DNA插入的高效编辑Easi-CRISPR系统,构建了源自腹股沟白色脂肪组织、缺失SLC25A35的前脂肪细胞(Slc25a35 KO细胞)以及对照细胞(图二A)。使用Mito-Tag方法从这些细胞中快速分离线粒体[8],并通过液相色谱-质谱联用(LC-MS)分析其代谢物(图二B)。结果发现,与对照线粒体相比,Slc25a35 KO细胞来源的线粒体中几种代谢物的水平更高,包括PEP、NAD+和1,3-二磷酸甘油酸(BPG,图二C)。相比之下,在整体细胞水平上并未观察到这些代谢物发生显著变化,而Slc25a35 KO细胞的TCA循环中间产物和α-酮异戊酸(KIV)水平相较于对照细胞有轻度升高(图二D)。当用整体细胞代谢物水平对线粒体代谢物水平进行归一化以计算线粒体富集程度时,发现在Slc25a35 KO细胞的线粒体中,PEP是对照细胞的9.4倍,是富集程度最高的代谢物(图二E),表明Slc25a35 KO线粒体中PEP水平的升高是由于线粒体内PEP的累积,而非总PEP含量的增加。
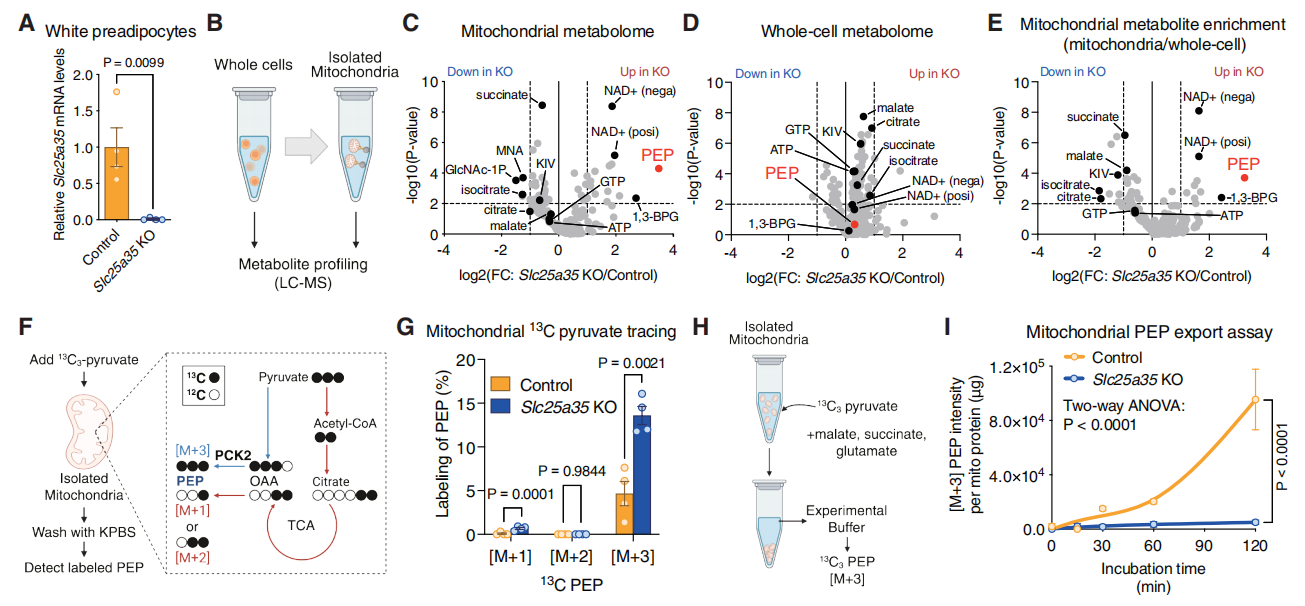
图二 SLC25A35是线粒体PEP输出所必需[5]
在对照细胞和Slc25a35 KO细胞分离的线粒体中进行13C示踪实验,将线粒体与13C3标记的丙酮酸共同孵育5分钟,快速洗涤两次,然后通过LC-MS分析标记的代谢物(图二F)。发现Slc25a35 KO细胞线粒体中M+3标记的PEP水平显著高于对照组,而两组间M+2标记的PEP水平没有差异(图二G),表明SLC25A35的缺失导致线粒体累积的PEP主要来源于PCK2底物M+3标记OAA,而不是通过TCA循环氧化丙酮酸所生成的OAA。为了验证这一可能性,研究者建立了一个实验体系,用于直接测定线粒体PEP的输出(图二H)。从前脂肪细胞中分离出的线粒体与13C标记的丙酮酸在含有苹果酸、琥珀酸和谷氨酰胺的培养基中共同孵育,以维持线粒体能量状态。随后,在孵育后的第15、30、60和120分钟收集培养基,并在其中检测到M+3标记的PEP,发现分离线粒体以时间依赖的方式主动分泌13C标记的PEP。然而,在Slc25a35 KO线粒体中,培养基中由线粒体输出的PEP显著减少(图二I)。以上数据表明,线粒体主动输出PEP的过程需要SLC25A35的参与。
研究者利用纯化的SLC25A35蛋白建立一个无细胞脂质体系统,来重建SLC25A35介导的PEP转运功能(图三A)。用表达小鼠SLC25A35-TwinStrep融合蛋白或空载体对照的杆状病毒感染Sf9细胞,随后进行亲和纯化(图三B)。将纯化的SLC25A35蛋白或空载体对照洗脱液分别掺入脂质体中。在预先装载了非标记PEP的SLC25A35脂质体中,观察到13C标记的PEP的转运水平显著高于对照脂质体(图三C)。为了确定转运特异性,在存在过量非标记PEP作为竞争物的条件下检测了13C-PEP的转运,发现13C-PEP向SLC25A35脂质体中的转运被完全抑制(图三C),支持了SLC25A35对PEP的底物特异性。在脂质体内外不同PEP浓度下,均能一致地观察到PEP转运活性(图三D)。
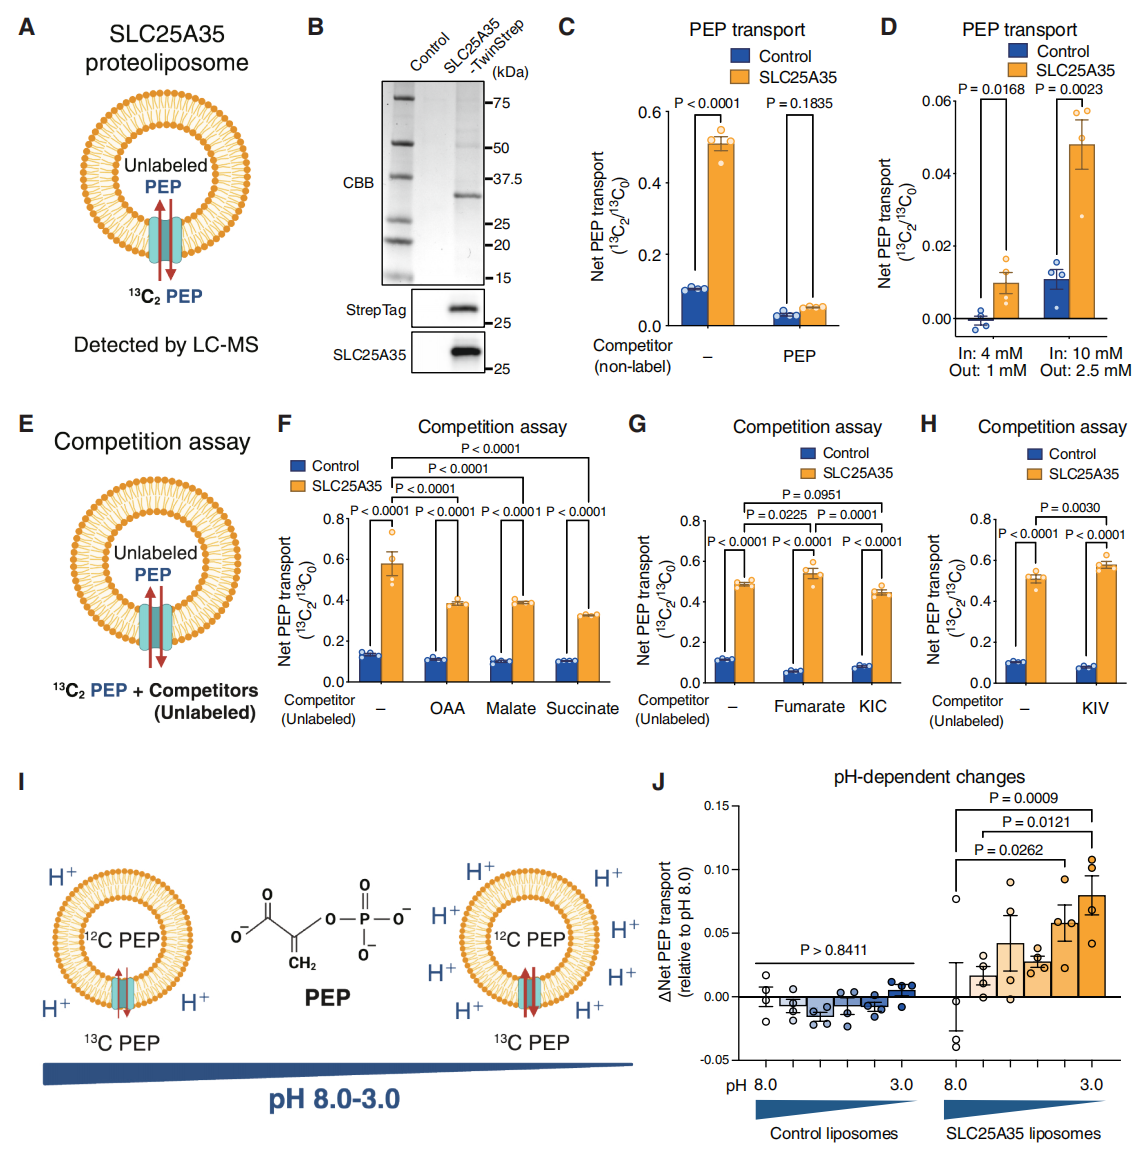
图三 SLC25A35介导的PEP转运功能重建[5]
为进一步确定底物特异性,在存在非标记的OAA、苹果酸、琥珀酸和富马酸作为竞争物的条件下,测定SLC25A35脂质体中13C标记PEP的转运情况(图三E)。在含有SLC25A35的蛋白脂质体中,始终能观察到13C-PEP的转运,但在存在OAA、苹果酸和琥珀酸时,13C-PEP的转运受到显著抑制(图三F)。而过量的富马酸并未阻断SLC25A35脂质体中13C-PEP的转运(图三G)。代谢组学研究发现Slc25a35 KO线粒体中KIV的富集程度降低,提示KIV和α-酮异己酸(KIC)可能是SLC25A35的底物。基于脂质体的底物竞争实验显示,在含有SLC25A35的脂质体中,过量的非标记KIV或KIC并不竞争13C-PEP的摄取(图三G和H)。在生理条件下,PEP带有净负电荷。这引出了一个问题:线粒体PEP的转运是否与跨膜的质子梯度相耦联,即线粒体膜电位。为了验证这一点,研究者制备了pH值从3.0到8.0不等的蛋白脂质体,以测定PEP转运对pH梯度的依赖程度(图三I)。结果显示,在较低pH条件下,SLC25A35脂质体中PEP的转运显著增强,而对照脂质体中则未观察到这一现象(图三J),表明SLC25A35 转运PEP的活性受线粒体膜电位的调控,提示线粒体膜电位可能是驱动SLC25A35进行PEP逆向转运的重要能量来源。
接下来,研究者应用计算模拟进一步评估SLC25A35以PEP为底物的转运能力。利用人SLC25A35的AlphaFold结构(AF-Q3KQZ1-F1-model_v4)来评估PEP作为底物的可能性。该结构显示出整体高置信度的预测评分,并呈现出溶质载体常见的形状特征,例如由垂直于线粒体内膜的六个跨膜α螺旋形成的通道样中心空腔[9](图四A)。此外,该空腔的内壁排列着极性和碱性氨基酸,包括Y72、Q73、N77、R80、Y124、K127、R175和R276,这些氨基酸在小鼠SLC25A35中均为保守残基(图四B)。进行诱导契合对接,以生成PEP与SLC25A35之间稳定且低能量的相互作用,其中PEP采取能够被SLC25A35中心空腔容纳的构象(图四C)。在该状态下,观察到以下相互作用:PEP的磷酸氧与SLC25A35的Q73和R276残基之间形成氢键和/或盐桥,以及PEP的羧基与SLC25A35的R175、Y124和Y72残基之间形成氢键(图四D)。
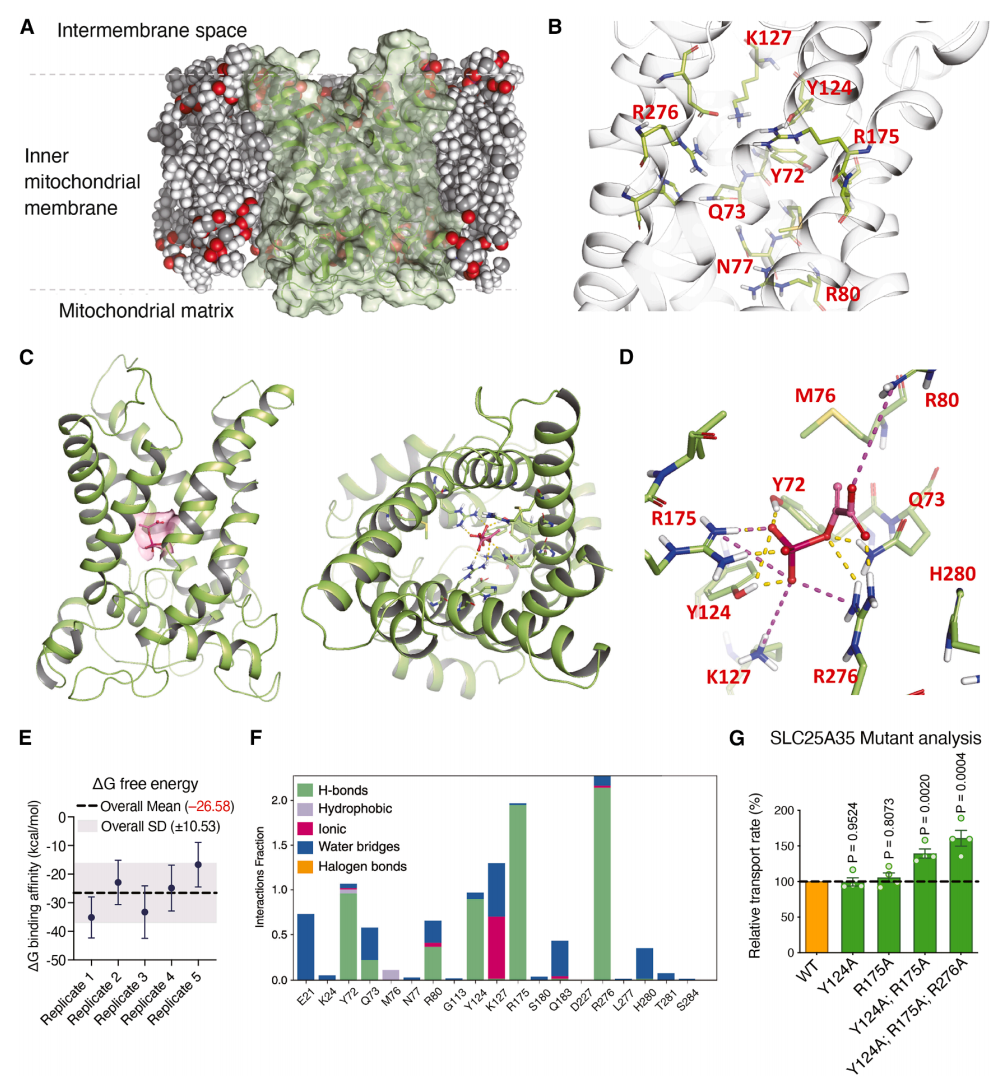
图四 SLC25A35介导PEP转运的结构解析[5]
随后,进行分子动力学研究,考虑SLC25A35在线粒体内膜中的取向,分别在有无PEP的条件下进行模拟。由此推断PEP与SLC25A35形成了一个稳定且可重现的复合物。SLC25A35-PEP相互作用的平均均方根偏差为1.73 Å,低于相应载脂蛋白(apo)模拟中观察到的2.10 Å。重要的是,估算得到的PEP-SLC25A35相互作用的平均ΔG结合亲和力为−26.58 ± 10.53 kcal/mol(图四E),并且在模拟轨迹中,关键的相互作用,尤其是与R276和R175的氢键始终维持着(图四F)。为确定关键残基在PEP转运中的功能需求,构建了SLC25A35的四个突变体制备蛋白脂质体,包括Y124A、R175A、R276A的单点突变及其组合突变。结果显示,单个SLC25A35突变体(Y124A、R175A)表现出的PEP转运活性与野生型相似。出乎意料的是,双突变体(Y124A/R175A)和三突变体(Y124A/R175A/R276A)的PEP转运能力高于野生型(图四G),这可能类似于其他SLC25载体的“盐桥网络削弱导致门控泄漏”机制,表明Y124、R175和R276是SLC25A35介导PEP转运的关键功能残基。
在脂肪细胞的胞质区室中,PEP可以转化为3-磷酸甘油醛 (GA3P) 和磷酸二羟丙酮 (DHAP),并进一步生成3-磷酸甘油 (G3P)。G3P作为甘油骨架,是将脂肪酸酯化为甘油脂所必需的,包括脂肪组织和肝脏中的甘油三酯(TG)、甘油二酯和磷脂(图五A)。于是,研究者探究通过 SLC25A35转运的线粒体 PEP 多大程度参与了脂肪细胞的GA3P和DHAP合成。在Slc25a35 KO腹股沟白色脂肪组织来源的脂肪细胞中进行13C3 标记的丙酮酸示踪实验,发现与对照细胞相比,Slc25a35 KO细胞产生13C标记的GA3P/DHAP水平显著降低了77.2%(图五B),腹股沟白色脂肪组织来源的分化脂肪细胞以及前脂肪细胞中G3P水平也显著降低(图五C)。为验证SLC25A35是否是脂肪细胞中TG合成所必需的,测定14C标记的丙酮酸掺入到脂质中的情况。结果显示,Slc25a35 KO脂肪细胞中14C标记的丙酮酸掺入到脂质中的水平显著降低:在无胰岛素刺激下降低27.9%,在胰岛素刺激下降低57.1%(图五D),而总细胞TG含量比对照脂肪细胞降低31.2%,且过表达Pck1也没能挽救(图五E)。进一步在同时缺失Slc25a35和Pck2的细胞中进行13C3标记丙酮酸的示踪实验,发现仅敲除Pck2也降低了13C标记的GA3P/DHAP水平,而在Slc25a35 KO细胞中进一步敲除Pck2未能进一步减少GA3P/DHAP的生成(图五F)。以上数据表明,Slc25a35 KO细胞中新生甘油的减弱依赖于PCK2生成的线粒体PEP,而非细胞的PEP总池。
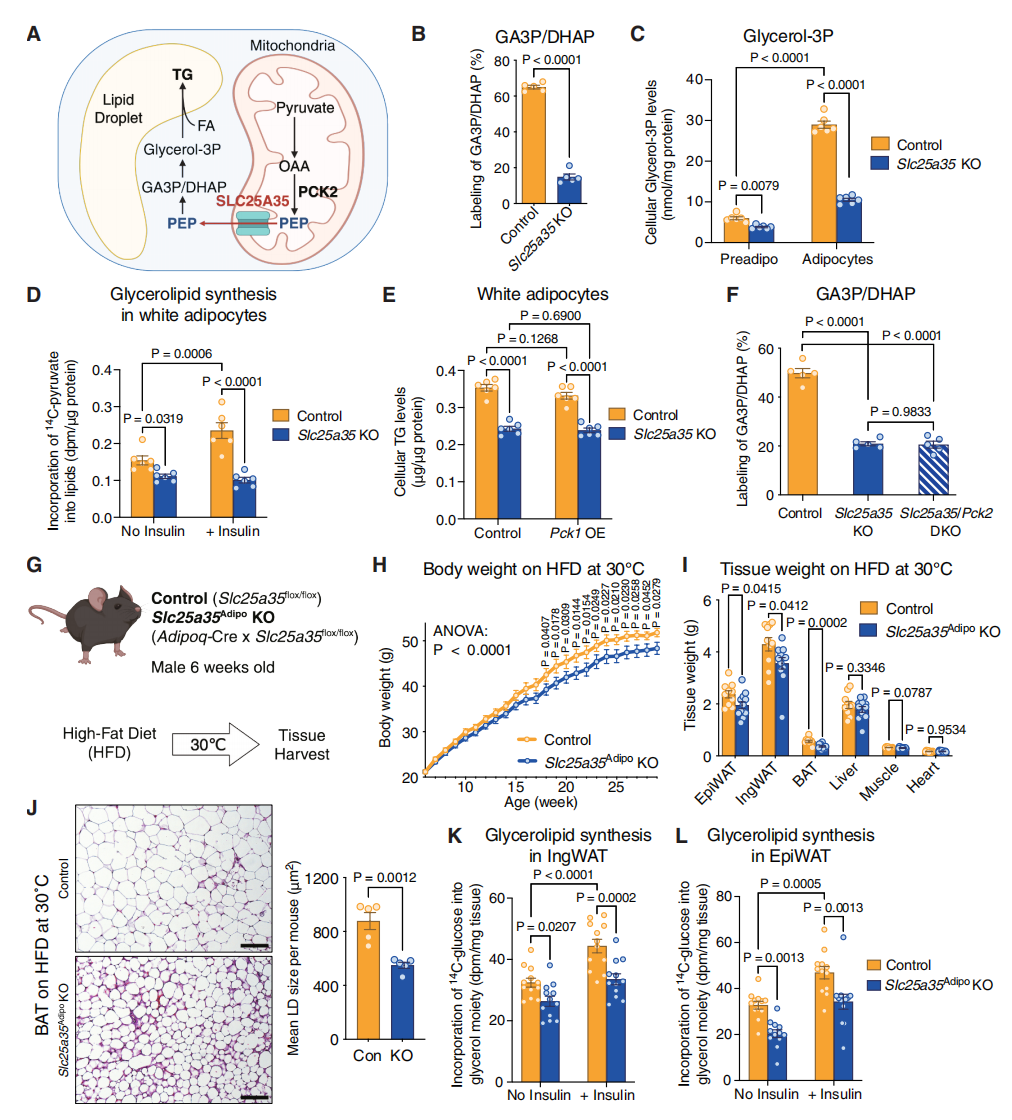
图五 脂肪组织中新生甘油需要SLC25A35介导的PEP转运[5]
甘油激酶可利用甘油生成G3P,而白色脂肪组织中甘油激酶的表达水平较低,因此通过甘油新生途径合成G3P被认为是脂肪组织中脂肪酸酯化的主要途径。然而,与胞质来源的PEP相比,线粒体来源的PEP对TG库的贡献仍不清楚。为此,研究者构建了Slc25a35flox/flox小鼠,并与Adipoq-Cre小鼠交配,生成脂肪特异性Slc25a35敲除小鼠(Slc25a35Adipo KO小鼠)。将Slc25a35Adipo KO小鼠和同窝对照小鼠置于30°C条件下,并喂食60%高脂饮食(HFD,图五G)。两种基因型小鼠的出生体重没有差异,但雄性Slc25a35Adipo KO小鼠在18周龄之后体重增加幅度虽不大,但显著低于对照小鼠(图五H)。体重的差异主要是由于腹股沟和附睾白色脂肪组织以及肩胛间棕色脂肪组织的质量较低所致,而肝脏或其他组织则没有差异(图五I)。组织学分析一致表明,Slc25a35Adipo KO小鼠肩胛间BAT中的脂肪细胞尺寸显著小于对照小鼠(图五J)。为了测定脂肪组织中14C标记葡萄糖掺入到甘油骨架的情况,对从脂肪组织中提取的脂质进行皂化处理,随后采用高碘酸-雪夫染色结合薄层色谱法(PAS-TLC)进行分析。结果显示,无论是否存在胰岛素刺激,Slc25a35Adipo KO小鼠腹股沟WAT中14C葡萄糖掺入到甘油脂甘油骨架的水平均低于对照小鼠(图五K)。类似地,Slc25a35Adipo KO小鼠附睾WAT中14C掺入到甘油骨架的水平也低于对照小鼠(图五L)。以上数据表明,线粒体通过SLC25A35将PEP输出到胞质区室,支持了甘油新生过程,从而促进脂肪组织中的甘油脂合成。
肝脏摄取的脂肪酸中约50%或更多会被重新酯化为TG,并以极低密度脂蛋白(VLDL)的形式释放,这一过程的紊乱会导致代谢功能障碍相关脂肪性肝病(MASLD)。对公开数据集的转录组分析显示,与健康受试者相比,MASLD肝脏中SLC25A35的表达有显著的上调(图六A)。类似地,与普通饮食(NCD)喂养的小鼠相比,HFD喂养小鼠肝脏中Slc25a35 mRNA水平更高(图六B)。为了探究肝脏特异性阻断SLC25A35能否预防饮食诱导的肝脏脂肪变性,研究者将Slc25a35flox/flox小鼠与Alb-Cre小鼠交配,构建了肝脏特异性敲除Slc25a35小鼠(Slc25a35Liver KO小鼠)。当小鼠在30°C HFD喂养时,Slc25a35Liver KO小鼠的体重有低于同窝对照小鼠的轻微趋势,但无显著差异(图六C)。H&E染色显示,与对照小鼠相比,Slc25a35Liver KO小鼠肝脏中的脂滴面积显著减少(图六D)。定量检测结果显示,Slc25a35Liver KO小鼠肝脏中TG水平显著低于对照小鼠(图六E),血清和肝脏中的甘油水平也显著低于对照小鼠(图六F和G)。脂质组学分析鉴定出Slc25a35Liver KO小鼠肝脏的多种脂质种类水平低于对照小鼠,包括TG、二酰甘油(DG)(16:1_20:4)、磷脂酰胆碱(PC)(18:0_22:5)、磷脂酰肌醇(PI)和神经酰胺(图六H)。通过巨噬细胞标志物(F4/80)免疫染色的组织学分析发现,Slc25a35Liver KO小鼠肝脏中的巨噬细胞浸润显著少于对照小鼠(图六I)。肝脏TG和炎症水平的降低与全身性葡萄糖代谢稳态的改善相关。在HFD喂养18周时,胰岛素耐量试验(ITT)显示,Slc25a35Liver KO小鼠比同窝对照小鼠对胰岛素更敏感(图六J)。
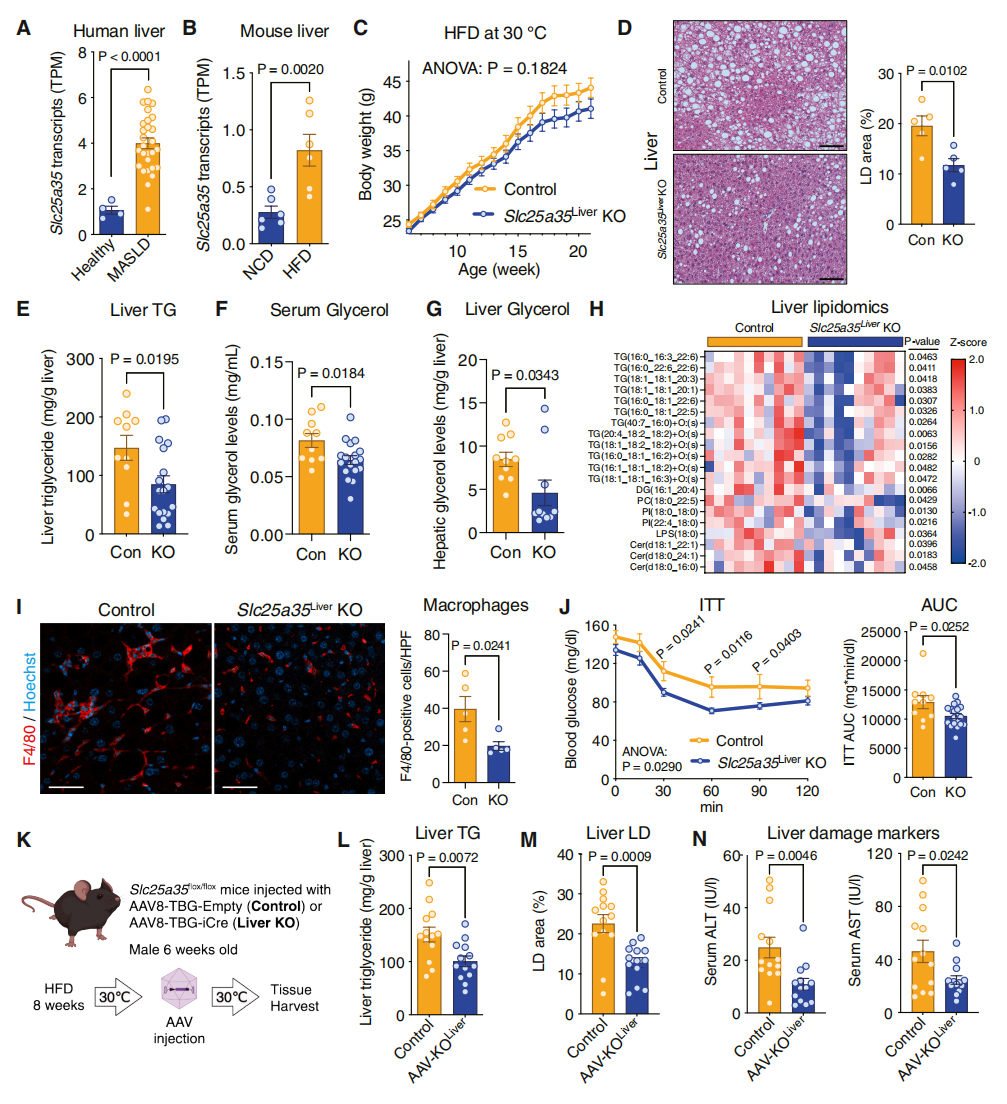
图六 阻断线粒体PEP转运可改善小鼠肝脏脂肪变性[5]
最后,研究者评估在肥胖小鼠中诱导性敲除SLC25A35能否改善肝脏脂肪变性,探索阻断SLC25A35介导脂肪生成的治疗潜力。将AAV8-TBG-iCre或对照递送至30°C HFD喂养8周的Slc25a35flox/flox小鼠肝脏中,急性耗竭SLC25A35(图六K)。结果发现,诱导性敲除SLC25A35使肝脏TG含量降低了33.4%(图六L),肝脏中的脂滴面积显著减少(图六M),肝损伤血清标志物丙氨酸氨基转移酶(ALT)和天冬氨酸氨基转移酶(AST)水平也显著降低(图六N)。以上数据表明,在小鼠肝脏中急性阻断SLC25A35,可有效改善肥胖相关的肝脏脂肪变性。
综上所述,该研究发现线粒体内膜蛋白SLC25A35是线粒体磷酸烯醇式丙酮酸(PEP)的转运蛋白,在脂肪生成细胞中负责将PCK2生成的PEP从线粒体转运到细胞质,其活性受线粒体膜电位的调控,进而调控甘油脂合成。脂肪组织中的甘油新生依赖于这一转运途径,SLC25A35缺失阻断了线粒体PEP外流,可限制甘油脂合成,从而改善肝脏脂肪变性。该研究填补了线粒体代谢物转运网络中的关键一环,揭示了线粒体调控脂质合成的一个全新机制,将线粒体能量代谢与脂质生成相耦合,为代谢性疾病治疗提供了一个新的靶点。提示靶向SLC25A35介导的线粒体PEP输出,能够选择性地抑制肝脏病理性脂质合成,从而缓解肝脏脂肪变性及其相关的炎症和胰岛素抵抗,展现出潜在的治疗前景。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:甜点
新媒体运营:suway
参考文献
1. Chakrabarty RP, Chandel NS: Mitochondria as Signaling Organelles Control Mammalian Stem Cell Fate. Cell stem cell 2021, 28(3):394-408.
2. Yu S, Meng S, Xiang M, Ma H: Phosphoenolpyruvate carboxykinase in cell metabolism: Roles and mechanisms beyond gluconeogenesis. Mol Metab 2021, 53:101257.
3. Merrins MJ, Corkey BE, Kibbey RG, Prentki M: Metabolic cycles and signals for insulin secretion. Cell metabolism 2022, 34(7):947-968.
4. Ho PC, Bihuniak JD, Macintyre AN, Staron M, Liu X, Amezquita R, Tsui YC, Cui G, Micevic G, Perales JC et al: Phosphoenolpyruvate Is a Metabolic Checkpoint of Anti-tumor T Cell Responses. Cell 2015, 162(6):1217-1228.
5. Yamamuro T, Katoh D, Silva GM, Nishida H, Oikawa S, Higuchi Y, Wang D, Fujimoto M, Yoshida N, Li M et al: Mitochondrial control of glycerolipid synthesis by a PEP shuttle. Cell 2026, 189(10):2988-3003.e2923.
6. Stark R, Kibbey RG: The mitochondrial isoform of phosphoenolpyruvate carboxykinase (PEPCK-M) and glucose homeostasis: has it been overlooked? Biochimica et biophysica acta 2014, 1840(4):1313-1330.
7. Kaplan RS, Mayor JA, Wood DO: The mitochondrial tricarboxylate transport protein. cDNA cloning, primary structure, and comparison with other mitochondrial transport proteins. The Journal of biological chemistry 1993, 268(18):13682-13690.
8. Chen WW, Freinkman E, Sabatini DM: Rapid immunopurification of mitochondria for metabolite profiling and absolute quantification of matrix metabolites. Nat Protoc 2017, 12(10):2215-2231.
9. Ruprecht JJ, Kunji ERS: The SLC25 Mitochondrial Carrier Family: Structure and Mechanism. Trends in biochemical sciences 2020, 45(3):244-258.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!