技术分享:病理tau结合Arc进入细胞外囊泡实现细胞间传播
神经退行性疾病的特征是特定脑区内的蛋白质聚集,并随着疾病进展扩散至全脑。tau蛋白的异常累积是阿尔茨海默病(AD)、额颞叶痴呆(FTD)和慢性创伤性脑病等的核心组织病理学标志,是由错误折叠的tau蛋白构成的细胞内神经原纤维缠结[1, 2]。在衰老过程中,tau蛋白发生过度磷酸化,导致其错误折叠并降低微管亲和力。病理性tau以细胞间传播的方式扩散,且扩散程度及水平与AD患者认知的下降程度密切相关[3]。在AD中,tau通过突触连接的神经环路传播,起始于蓝斑或内嗅皮层,最终扩散至海马和新皮质区域[4]。神经元活动调节tau从神经元中的释放,高神经元活动水平则加剧了tau病理。然而,这种活动依赖性tau释放和传播的机制尚不明确。Tau以游离蛋白形式或包裹在细胞外囊泡(EV)中被分泌[5],健康神经元通过包括低密度脂蛋白受体相关蛋白(LRP)介导的摄取等机制摄取胞外游离tau[6],而EV-tau介导的内吞途径尚不明确。
神经元基因Arc是突触可塑性和记忆巩固的主要调控因子,与AD病理相关[7]。在疾病发病早期,AD患者以及包括突变tau转基因小鼠在内的AD小鼠模型中观察到与Arc蛋白水平升高相关的惊厥活动增加。Arc蛋白可自发形成病毒样衣壳,包封RNA,这一特性来自其逆转录转座子起源。Arc通过I-BAR蛋白IRSp53在神经元活动后从树突释放到EV中,而IRSp53最近也被发现与tau相互作用[8]。过度磷酸化的tau错误定位于树突及突触后组分,导致突触功能障碍[9]。综合这些数据提示,Arc可能在调控tau释放和传播中发挥重要作用。
2026年7月,Cell期刊报道一项研究,发现神经元基因Arc通过直接的蛋白质-蛋白质相互作用,在细胞外囊泡(EV)释放tau蛋白的过程中起关键作用。衣壳形成蛋白Arc可与tau结合,并将其包装入神经元释放的EV中,这一过程既能清除胞内具有毒性的tau,又能促进tau在细胞间的传播。在阿尔茨海默病(AD)患者大脑中分离的脑源性EV中,Arc水平与磷酸化tau水平呈强正相关。Arc敲除小鼠在疾病早期表现出细胞内tau蛋白积累增加,并伴有细胞毒性增强,而tau蛋白的细胞间传播几乎完全缺失。该研究重新定义了Arc蛋白在AD中的角色,首次明确Arc可将具有传播能力的tau包装进神经元释放的EV中,为tau的跨神经元传播提供了一个具体的、可干预的分子靶点[10]。
首先,研究者探究Arc是否促进神经元EV中tau的释放。采用野生型(WT)和Arc敲除(KO)的大鼠原代皮层神经元[11],在体外培养第10天慢病毒转导表达P301L突变hTau(hSyn-eGFP-2A-2N4R-hTau),在第17天收集细胞裂解液和培养基。通过尺寸排阻色谱(SEC)分离EV,使用hTau特异性ELISA定量检测裂解液和EV中的hTau水平。结果显示,WT和Arc KO细胞裂解液中的总hTau水平相当,而Arc KO原代神经元中EV-hTau的释放显著减少(图一A)。Arc EV的生物发生和释放由I-BAR蛋白IRSp53所介导,而IRSp53也与tau相互作用。为了探究IRSp53的作用,研究者在Neuro2a细胞中单独或共转染P301L-hTau、Arc和IRSp53,发现仅当Arc和IRSp53共同表达时,EV-hTau释放才显著增强,且释放的Arc比例更高(图一B)。以上结果表明,Arc通过IRSp53介导途径促进EV包装hTau,进而EV-hTau从神经元中释放。
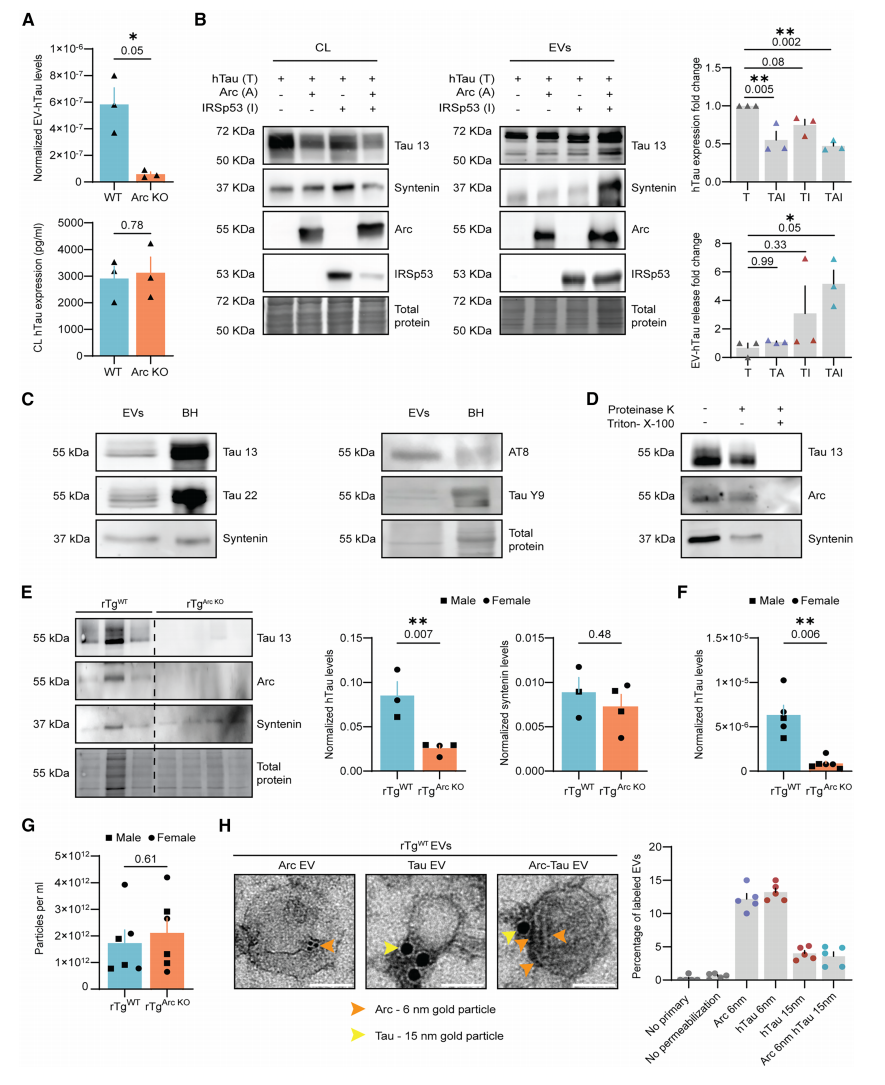
图一 Arc介导神经元EV中hTau的释放[10]
为验证Arc是否在体内调控tau的释放,研究者采用超速离心结合SEC从4月龄rTgWT小鼠脑组织中分离EV,这些小鼠在前脑兴奋性神经元中表达转基因P301L hTau,在钙/钙调蛋白依赖性蛋白激酶II(CaMKII)启动子驱动下形成tau聚集体。结果显示,在脑源性EV中可检测到hTau,包括全长和磷酸化形式的hTau(图一C),以及Arc、hTau和syntenin在无去垢剂时可抵抗蛋白酶K的降解(图一D),表明它们位于EV腔内。为了确定Arc是否促进脑EV中hTau的释放,研究者将rTgWT小鼠与Arc KO小鼠杂交获得rTgArc KO小鼠,使用Western blot、ELISA检测EV中hTau水平。结果显示rTgArc KO小鼠的EV中hTau水平显著降低(图一E和F)。然而,纳米颗粒示踪分析结果显示,rTgWT与rTgArc KO小鼠的整体脑EV产量相当(图一G),表明体内Arc缺失并不影响脑EV的生成总量。
进一步评估hTau和Arc是否共同包装在脑源性EV中。免疫金电镜观察发现脑EV中部分仅含Arc、部分仅含hTau,或两者兼有(图一H)。当使用6 nm金颗粒标记Arc或hTau时,约12%的EV对每种蛋白呈阳性(图一G)。相反,当使用6 nm金颗粒标记Arc、15 nm金颗粒标记hTau进行双免疫金标记时,约3.5%的EV呈双阳性(图一H)。然而,较大的15 nm金颗粒仅能标记约4%的EV含hTau,可能由于较大的15 nm金颗粒穿透EV膜的能力较差,而去垢剂产生的孔径可能小于15 nm[12],因此Arc-hTau共阳性EV的真实情况可能被低估。以上结果表明,部分EV同时含有Arc和hTau,在体内Arc对于tau包装入脑EV中至关重要。
神经元摄取细胞外错误折叠的tau后,可能导致自身正常生理性tau发生错误构象并聚集,而这些异常聚集的tau蛋白甚至能够像“种子”一样,在神经元之间传播[13]。AD患者来源的EV已被证实具有这种播种能力[5]。为确定EV-hTau的传播能力,研究者在HEK293 tau生物传感器细胞中进行基于荧光共振能量转移(FRET)的tau播种实验[14],该细胞稳定表达hTau(P301S)RD-CFP/YFP。hTau P301S重复结构域(RD)仅在具有播种能力的hTau存在时发生聚集,产生FRET信号(图二A)。为确定脑EV的传播能力,研究者将4月龄rTgWT或rTgArc KO小鼠的脑EV转染进生物传感器细胞,通过流式细胞术检测FRET阳性细胞比例和密度。结果显示,rTgWT脑源性EV能显著诱导出FRET阳性细胞以及较高的FRET密度,而rTgArc KO脑源性EV诱导的FRET阳性细胞极少,FRET密度显著降低,表明其hTau传播能力大大减弱(图二A和B)。以上结果表明,脑源性EV中的hTau能够播种tau聚集体,而Arc参与了具有播种能力EV-hTau的包装。
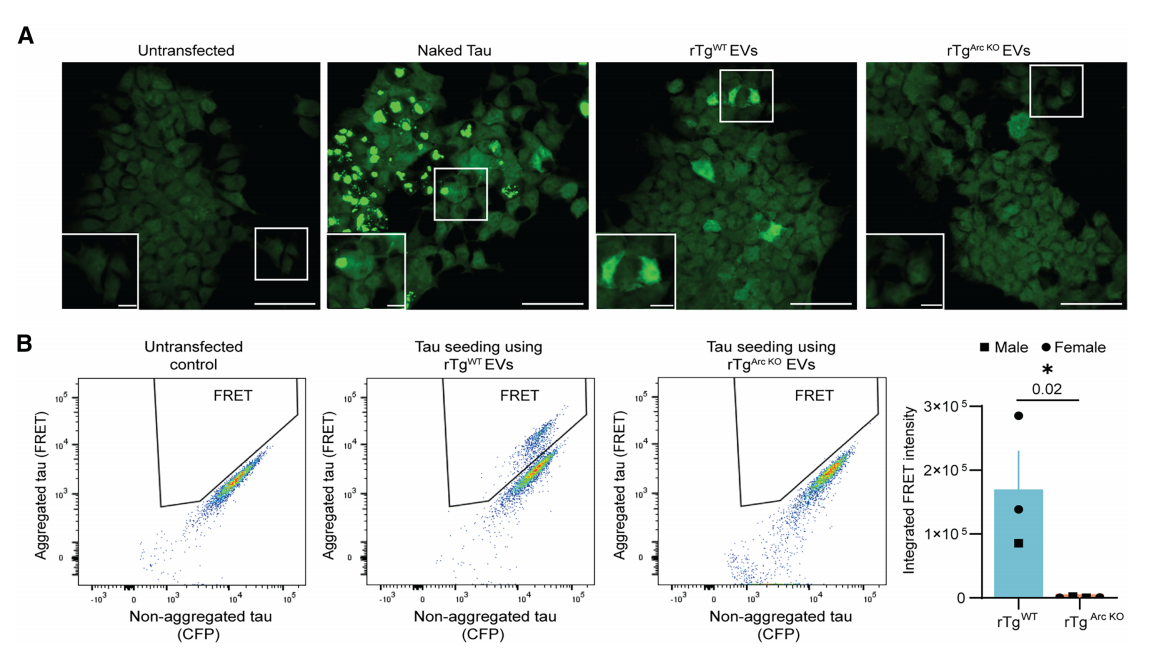
图二 脑源性EV中的hTau能够播种tau聚集体[10]
rTgWT小鼠脑源性EV含有Arc和hTau,且该小鼠品系中突变型hTau高度过表达。为了确定人脑源性EV是否也含有Arc和hTau,研究者获取了6例年龄匹配的非AD对照者和6例Braak六级AD患者的死后速冻前额叶皮层组织,分离EV。结果显示,所分离EV呈现典型的EV形态(图三A),粒径小于200 nm(图三B),对照者与AD患者的脑EV在整体形态和大小上未见可检测的差异(图三A和B)。非AD与AD组间,脑EV中syntenin、Arc、总hTau及磷酸化hTau水平均无统计学显著差异(图三C),但在AD脑匀浆中观察到总磷酸化hTau水平升高。EV中Arc与磷酸化hTau水平呈正相关,且在非AD和AD的脑EV中,Arc水平高的对应磷酸化hTau水平也高(图三C和D)。AD脑EV中存在着Arc-hTau双标记的EV,仅含Arc、仅含hTau和Arc-hTau共阳性的EV分别约占10%、15%和4%,与小鼠脑源性EV的发现一致(图一E)。以上结果表明,在人脑中Arc和hTau可共同包装入EV,且Arc驱动磷酸化hTau在EV中的释放。
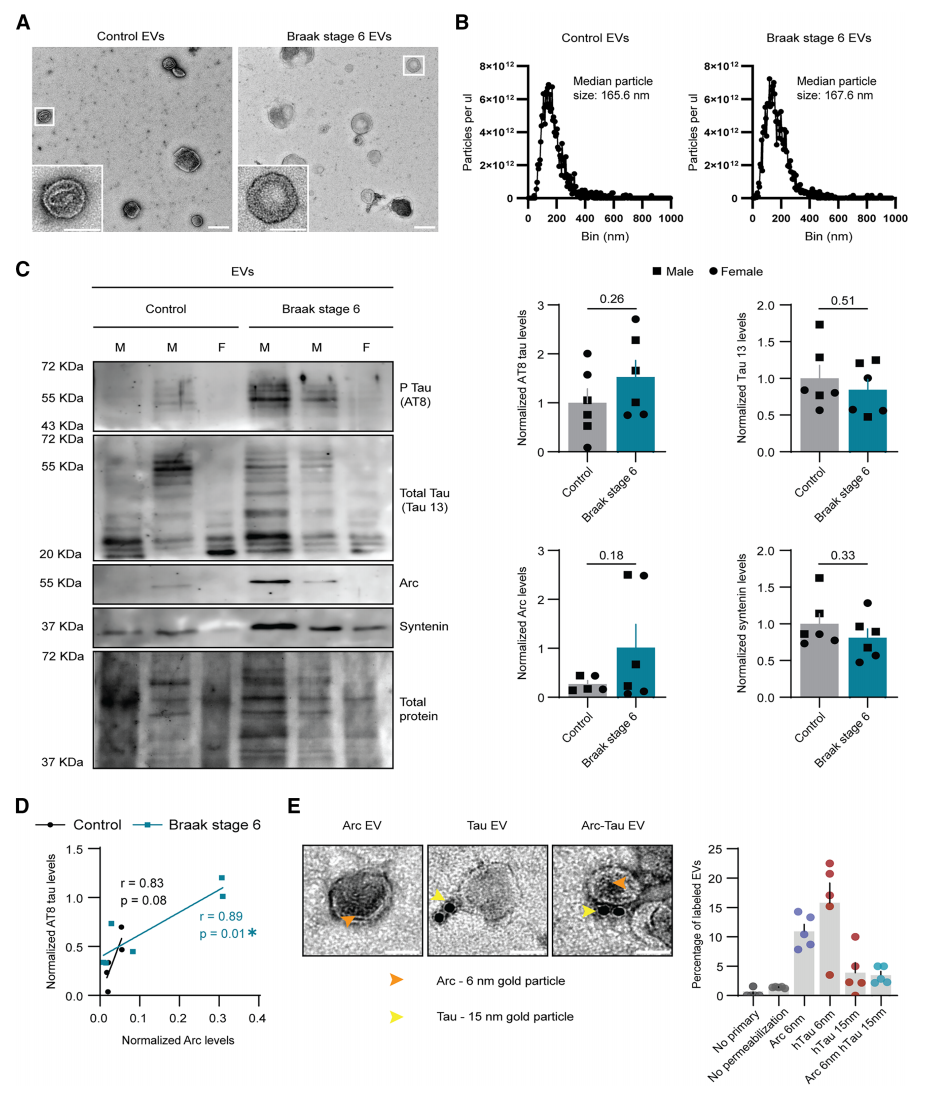
图三 人脑源性EV含有Arc和磷酸化tau[10]
鉴于Arc依赖性EV-hTau释放的特异性,研究者假设Arc通过直接的蛋白质相互作用将hTau包装入EV。从大肠杆菌中纯化谷胱甘肽S-转移酶(GST)、GST-Arc和GST-Endophilin,固定于磁珠后,随后与未转染细胞(UT)或转染WT或P301L hTau的HEK293T细胞裂解液孵育,进行体外结合实验。结果显示,WT和P301L hTau均能结合纯化的Arc蛋白,但不结合GST或GST-Endophilin(图四A)。还观察到纯化的重组突变型hTau蛋白能结合纯化的Arc蛋白(图四B),表明二者存在特异性的直接相互作用。由于Arc EV释放由IRSp53所介导,研究者还检测了Arc、hTau和IRSp53是否在体内相互作用。为诱导Arc表达,将4月龄rTgWT小鼠置于丰富刺激环境中6小时,小鼠皮层裂解液免疫共沉淀实验结果显示,hTau和IRSp53均与Arc共沉淀(图四C),表明在活体小鼠脑中Arc、hTau和IRSp53存在相互作用。为确定人脑中Arc、hTau和IRSp53是否也存在相互作用,研究者从非AD对照者、Braak二级AD患者和Braak六级AD患者的死后大脑前额叶皮层组织中免疫沉淀hTau。结果显示,在对照者和AD患者脑中,Arc和IRSp53均与hTau共沉淀(图四D)。为检测hTau磷酸化是否影响Arc-hTau结合,将GST-Arc与SF9细胞来源的磷酸化hTau或经磷酸酶处理的去磷酸化hTau孵育,结果发现Arc与磷酸化hTau的结合亲和力显著高于非磷酸化hTau(图四E)。以上结果表明,Arc对磷酸化hTau具有更高亲和力,Arc通过与hTau直接结合,与IRSp53形成三元复合物。
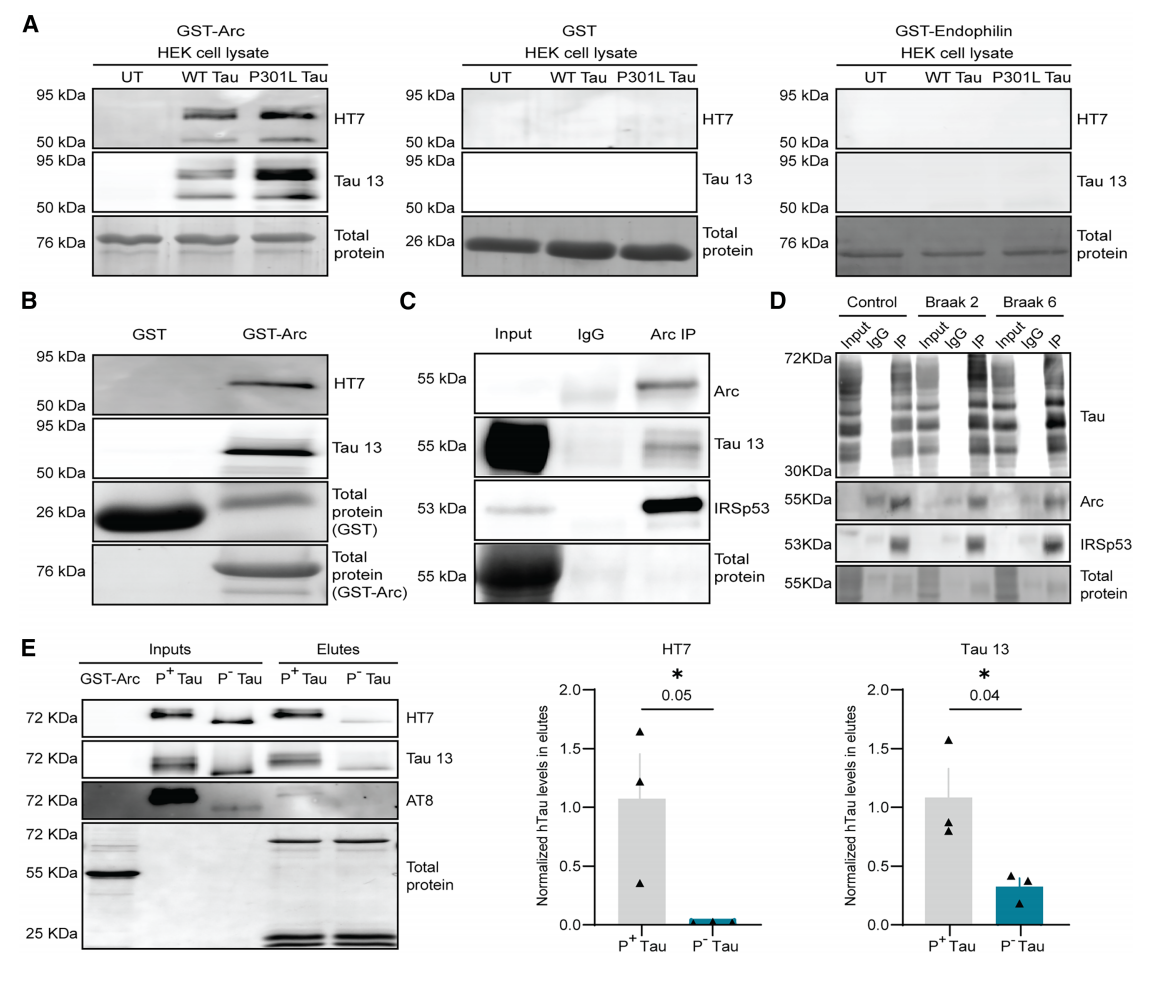
图四 Arc、IRSp53与hTau在小鼠和人脑皮层中直接相互作用[10]
比较rTgWT与rTgArc KO同窝小鼠的脑组织,评估背侧海马CA1区的总hTau水平,发现与rTgWT小鼠相比,rTgArc KO小鼠单个神经元和树突中的细胞内hTau水平显著增加(图五A和C),且CA1细胞体层的神经元数量减少(图五B和D)。为评估细胞内hTau积累是否与神经元毒性相关,研究者比较了4月龄rTgWT与rTgArc KO小鼠背侧CA1区的TUNEL染色,结果发现rTgArc KO小鼠TUNEL阳性染色面积显著增加,提示该区域细胞死亡显著增加(图五E-G)。为确定rTgArc KO小鼠在更晚年龄时是否加速tau病理,检查8月龄rTgWT与rTgArc KO小鼠的hTau表达和细胞死亡,发现4月龄和8月龄两种基因型间均无显著差异。以上结果表明,在疾病进展早期,Arc缺失导致神经元内hTau积累,但并不会在发病后期显著加速tau病理。
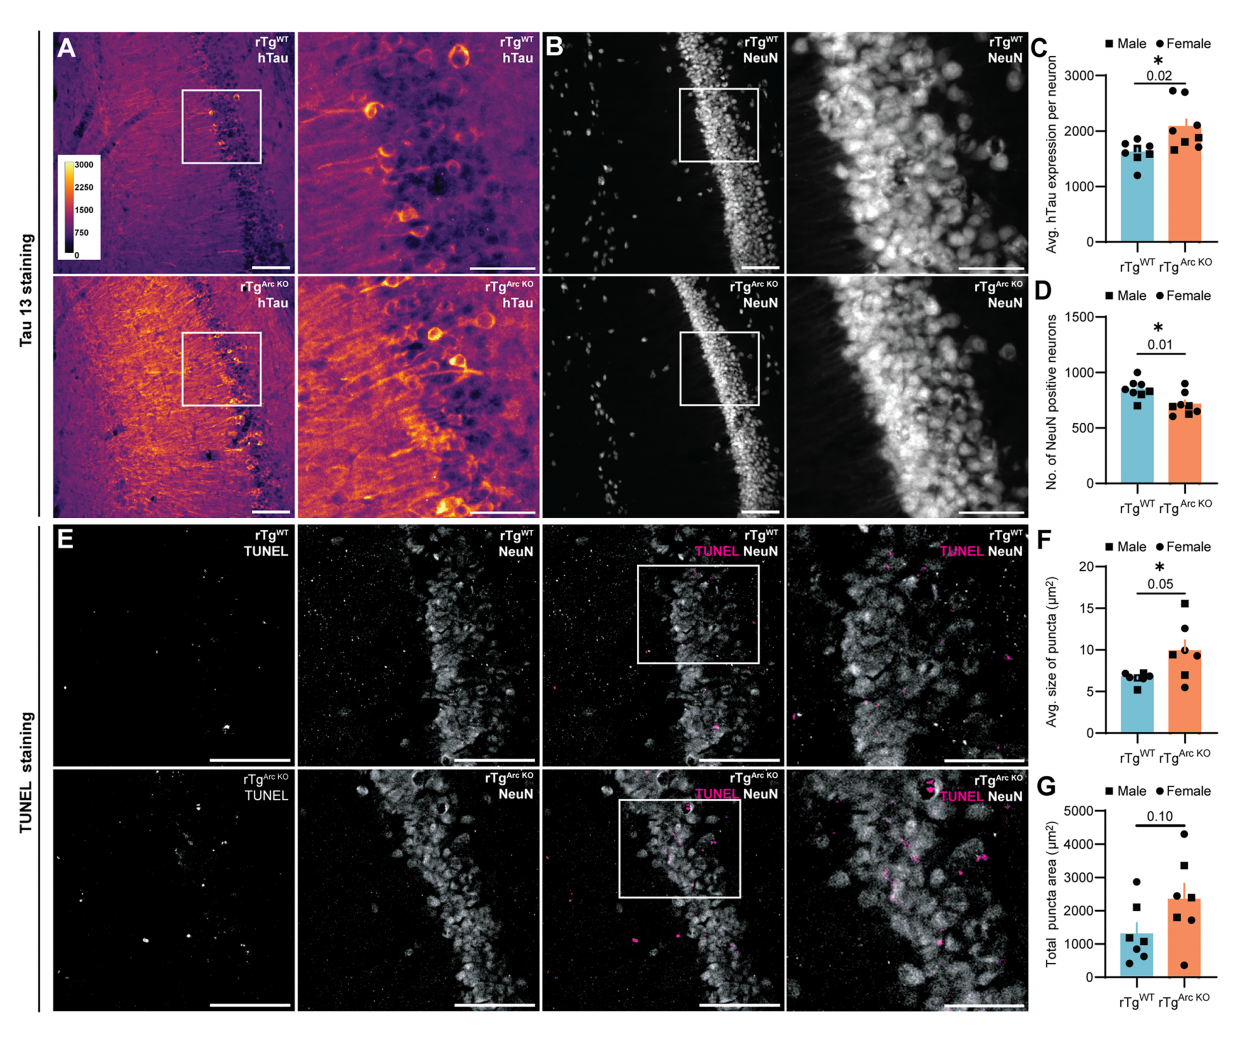
图五 rTgArc KO小鼠神经元的细胞内hTau积累,加剧细胞死亡[10]
Tau的细胞间传播依赖于EV释放和摄取效率[15]。为了确定Arc是否在hTau从供体神经元向受体神经元的细胞间传播中起关键作用,研究者进行hTau传播实验。在体外培育原代海马神经元,并稀疏转导AAV-hSyn-eGFP-2A-2N4R hTau(P301L)。该构建体可从单条mRNA产生等摩尔比例的eGFP和hTau蛋白,2A肽序列在翻译过程中自剪切,将eGFP和hTau分离为独立蛋白(图六A)。eGFP与hTau的免疫荧光可区分出,通过细胞间传播接收hTau的神经元只表达hTau而不表达GFP(图六A)。该构建体稀疏转导WT和Arc KO原代海马神经元,7天后发现两种基因型中均只能观察到GFP/hTau双阳性神经元,未见hTau转移,而转导14天后发现WT和Arc KO中供体神经元(GFP+, hTau+)比例相同,但Arc KO神经元中hTau受体神经元(GFP-, hTau+)的比例显著减少(图六B-D)。为检测Arc是否在体内hTau细胞间传播中发挥作用,研究者将hSyn-eGFP-2A-2N4R hTau(P301L)注射至6月龄WT和Arc KO小鼠的内侧内嗅皮层(图六E)进行稀疏标记,10周后收集大脑并对注射部位对侧内嗅皮层连续切片进行成像(图六F)。结果显示,两组小鼠注射部位对侧内嗅皮层中供体神经元数量相当(图六G和H),但Arc KO小鼠中hTau受体神经元显著减少(图六G和I)。以上结果表明,Arc对hTau的神经元间传播至关重要。
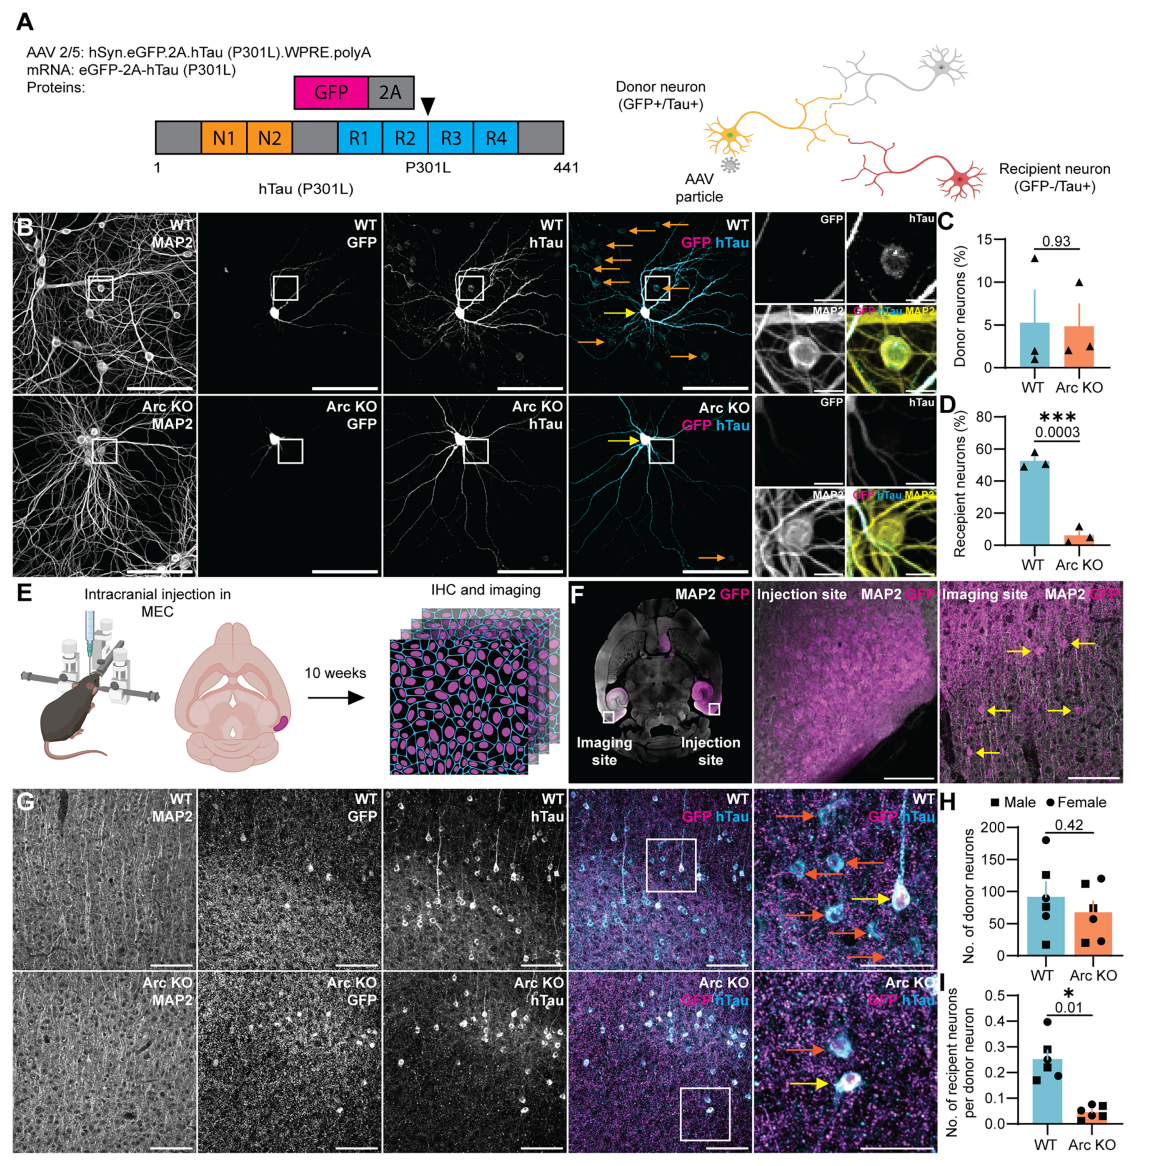
图六 Arc对hTau的细胞间传播至关重要[10]
综上所述,该研究描述了Arc可通过蛋白质-蛋白质直接相互作用,将hTau包装入细胞外囊泡(EV)中的特定分子作用。具体而言,Tau蛋白发生过度磷酸化,并错误定位至突触后组分。在阿尔茨海默病(AD)早期,由于神经元过度兴奋,Arc水平升高,tau、Arc和IRSp53相互作用,促进Arc衣壳形成及EV生成。Tau被包装入EV中,并响应神经元活动而释放,进而被邻近神经元摄取后,递送的病理性tau在胞内引发tau聚集的播种效应。Arc缺失后,由于缺乏EV介导的tau释放,病理性tau在神经元内蓄积,导致细胞毒性并加剧细胞死亡,同时tau病理的整体扩散减少(图七)。该研究阐明了Arc作为tau EV包装和传播的关键调控因子及其分子机制,为tau蛋白相关疾病治疗提供了信息。在携带病理性tau的细胞外囊泡从病变神经元中释放出来,但尚未传播到健康神经元的这一路径进行阻断,将是一种有前景的治疗策略。
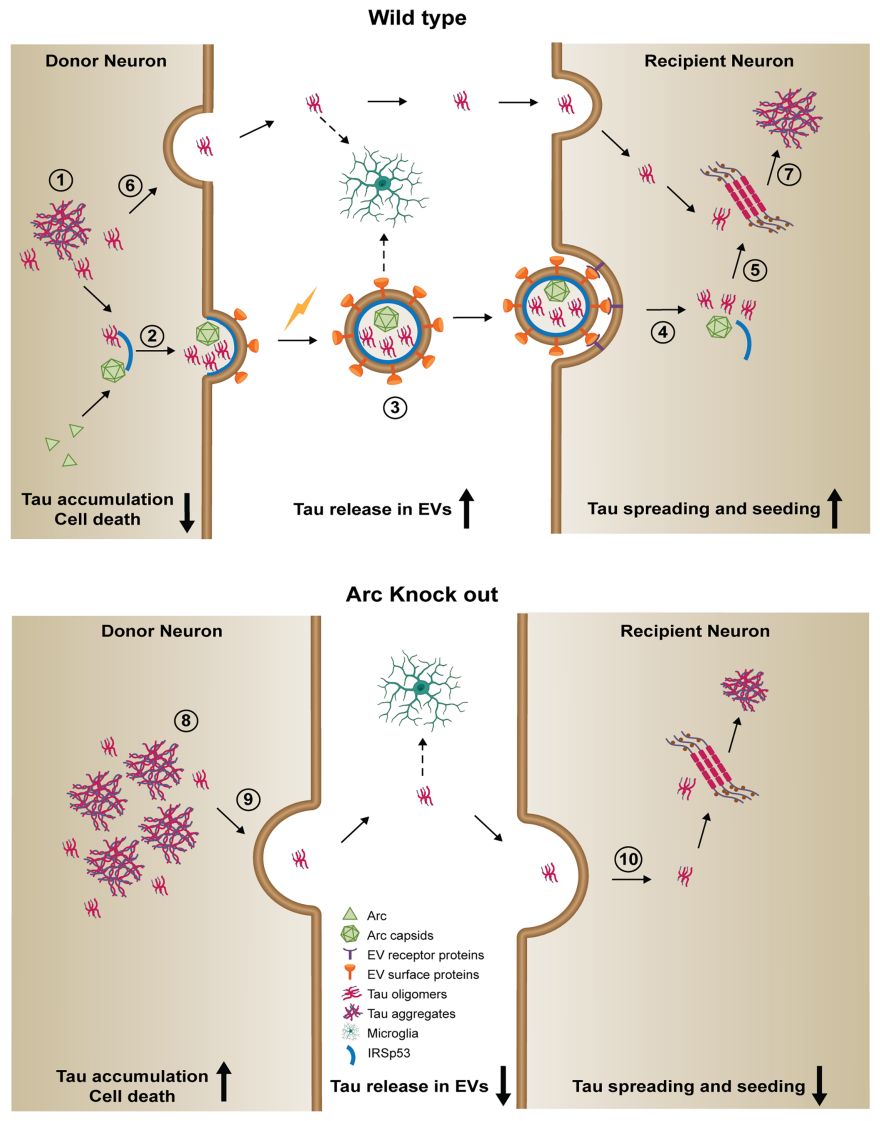
图七 Arc通过蛋白质-蛋白质相互作用将hTau包装入EV中[10]
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:甜点
新媒体运营:suway
参考文献
1. Gotz J, Halliday G, Nisbet RM: Molecular Pathogenesis of the Tauopathies. Annu Rev Pathol 2019, 14:239-261.
2. Annaert W, De Strooper B: A cell biological perspective on Alzheimer's disease. Annu Rev Cell Dev Biol 2002, 18:25-51.
3. Bejanin A, Schonhaut DR, La Joie R, Kramer JH, Baker SL, Sosa N, Ayakta N, Cantwell A, Janabi M, Lauriola M et al: Tau pathology and neurodegeneration contribute to cognitive impairment in Alzheimer's disease. Brain 2017, 140(12):3286-3300.
4. Braak H, Braak E: Neuropathological stageing of Alzheimer-related changes. Acta Neuropathol 1991, 82(4):239-259.
5. Ruan Z, Pathak D, Venkatesan Kalavai S, Yoshii-Kitahara A, Muraoka S, Bhatt N, Takamatsu-Yukawa K, Hu J, Wang Y, Hersh S et al: Alzheimer's disease brain-derived extracellular vesicles spread tau pathology in interneurons. Brain 2021, 144(1):288-309.
6. Rauch JN, Luna G, Guzman E, Audouard M, Challis C, Sibih YE, Leshuk C, Hernandez I, Wegmann S, Hyman BT et al: LRP1 is a master regulator of tau uptake and spread. Nature 2020, 580(7803):381-385.
7. Kerrigan TL, Randall AD: A new player in the "synaptopathy" of Alzheimer's disease - arc/arg 3.1. Front Neurol 2013, 4:9.
8. Sinsky J, Majerova P, Kovac A, Kotlyar M, Jurisica I, Hanes J: Physiological Tau Interactome in Brain and Its Link to Tauopathies. J Proteome Res 2020, 19(6):2429-2442.
9. Colom-Cadena M, Davies C, Sirisi S, Lee JE, Simzer EM, Tzioras M, Querol-Vilaseca M, Sanchez-Aced E, Chang YY, Holt K et al: Synaptic oligomeric tau in Alzheimer's disease - A potential culprit in the spread of tau pathology through the brain. Neuron 2023, 111(14):2170-2183 e2176.
10. Tyagi M, de Hoog E, Grega M, Sullivan KR, Walker AC, Chadha R, Northrop A, Fabian B, Hummer G, Fuxreiter M et al: Arc mediates intercellular tau transmission via extracellular vesicles. Cell 2026, 189(15):4706-4723 e4713.
11. Sullivan K, Ravens A, de Hoog E, Walker A, Kilberg TR, Keceli SK, Einstein J, Tyagi M, Kicmal T, Hantak MP et al: Arc mediates intercellular synaptic plasticity via IRSp53-dependent extracellular vesicle biogenesis. Preprint at bioRxiv.
12. Hagiwara H, Aoki T, Suzuki T, Takata K: Pre-embedding immunoelectron microscopy of chemically fixed mammalian tissue culture cells. Methods Mol Biol 2010, 657:145-154.
13. Frost B, Jacks RL, Diamond MI: Propagation of tau misfolding from the outside to the inside of a cell. J Biol Chem 2009, 284(19):12845-12852.
14. Holmes BB, Furman JL, Mahan TE, Yamasaki TR, Mirbaha H, Eades WC, Belaygorod L, Cairns NJ, Holtzman DM, Diamond MI: Proteopathic tau seeding predicts tauopathy in vivo. Proc Natl Acad Sci U S A 2014, 111(41):E4376-4385.
15. De La-Rocque S, Moretto E, Butnaru I, Schiavo G: Knockin' on heaven's door: Molecular mechanisms of neuronal tau uptake. J Neurochem 2021, 156(5):563-588.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!