技术分享:基因组不稳定触发细胞间DNA转移
哺乳动物基因组在细胞间期被保护限制于细胞核内,而基因组不稳定可导致核DNA错误定位于细胞质。例如,有丝分裂错误可能将分离异常的染色体包裹在胞质的异常结构微核内。虽然微核可触发p53依赖性的细胞周期阻滞,但仍有细胞绕过检查点继续进行细胞分裂[1]。在间期阶段,微核包膜的破裂会破坏正常的核质区室化结构,使微核内的双链DNA暴露于细胞质中[2],进而可能通过自噬机制和/或通过核酸酶活性诱导染色体断裂而被清除[3]。微核也可在整个间期阶段持续存在,并延续至后续有丝分裂阶段,从而引发进一步的DNA损伤爆发,导致灾难性的染色体断裂,这一过程被称为染色体碎裂[4]。有丝分裂后,来自微核的断裂染色体片段可重新分配到一个或两个子细胞的细胞核中,产生易出错的复杂基因组重排[5]。尽管存在一些机制,能够在分裂期将断裂的染色体片段物理性束缚在邻近区域,但仍有一部分片段无法重新融入细胞核中,而是错误地积聚在细胞质内[6]。除了激活细胞自主信号程序如胞质DNA感应通路cGAS-sting通路外,目前尚不清楚暴露于细胞质中的微核和/或DNA片段是否能以非细胞自主的方式来影响邻近细胞[7]。
哺乳动物细胞能够通过形成纳米管的直接连接或分泌细胞外囊泡的间接方式来传递胞质物质,包括细胞器线粒体和溶酶体、脂质、核糖核酸以及蛋白质等[8]。纳米管介导的物质转移调控着真核生物的关键生理过程,例如小鼠的心脏形态发生与神经元通讯、斑马鱼的胚胎发育以及果蝇的干细胞信号传导[9]。然而,在哺乳动物体内,胞质DNA能否通过类似机制进行细胞间转移仍尚未报道。
2026年7月,Cell期刊报道了一项研究,发现胞质DNA可通过纳米管这一连接结构在相邻人类细胞间直接转移,促使供体细胞DNA与受体细胞基因组发生混合。采用多种诱导基因组不稳定的方法,包括暴露于纺锤体毒素、电离辐射及Cas9诱导的染色体断裂,均能在癌性与非癌性细胞中促进纳米管介导的DNA转移。这些转移的DNA片段可作为功能性染色体外遗传元件在受体宿主基因组中稳定遗传,进而赋予了受体细胞可遗传的表型性状。该研究揭示了哺乳动物细胞中存在一种类似水平基因转移的机制,细胞间的直接接触可以直接传递基因组不稳定性并重塑邻近细胞的基因组,深化了对细胞间相互作用如何影响生理与病理状态的理解[10]。
首先,研究者探究人类细胞的基因组物质能否在细胞间转移。为诱导有丝分裂错误,使用靶向着丝粒相关蛋白E(CENP-E)运动蛋白和单极纺锤体1(Mps1)激酶的有丝分裂抑制剂,处理hTERT永生化二倍体人视网膜色素上皮(RPE-1)细胞,并使用双链DNA特异性荧光染料(SiR-DNA)标记DNA进行活细胞成像监测。发现DNA通过类似纳米管隧道结构的瞬时连接结构从供体细胞的胞质直接转移至邻近受体细胞(图一A)。为了可视化DNA转移事件,使用细胞松弛素D抑制肌动蛋白聚合阻止细胞迁移,暴露出相邻细胞之间预先存在的纳米管网络。细胞松弛素D处理后,诱导有丝分裂错误,显著提高了纳米管上DNA转移事件的频率(图一B和C),且未影响自发性纳米管形成的基线水平(图一D),表明纳米管的生物发生与基因组不稳定性无关。此外,测量跨越相邻细胞间约10–60 μm长度的单个纳米管上DNA转移动力学,平均运输速度为390 nm/min,而未使用有丝分裂抑制剂时为360 nm/min(图一E)。
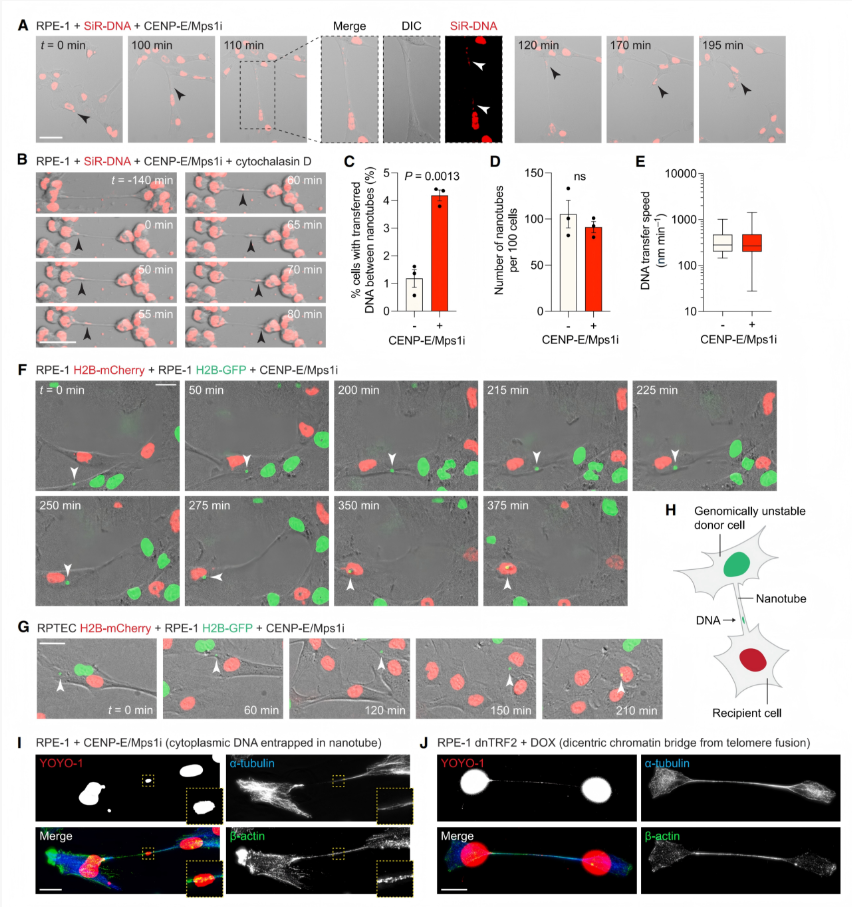
图一 在人类细胞中通过纳米管实现细胞间DNA转移[10]
为避免抑制肌动蛋白的相关毒性,后续所有实验都在不含细胞松弛素D的条件下进行。研究者表达荧光标记的组蛋白H2B,进行活细胞成像来追踪染色质。将H2B-GFP或H2B-mCherry标记的RPE-1细胞群体按1:1比例共培养,在有丝分裂抑制剂处理后,发现H2B-GFP标记的微核直接转移至H2B-mCherry细胞中,并在供体细胞迁移过程中持续稳定地与受体细胞稳定相连(图一F)。同理,在RPE-1细胞和hTERT永生化二倍体人肾近端肾小管上皮细胞(RPTEC)的差异标记共培养中,也观察到细胞间DNA转移(图一G),表明细胞质DNA转移不局限于单一细胞类型,可发生在不同类型的上皮细胞之间(图一H)。成功的DNA转移会导致受体细胞的细胞核与细胞质DNA之间的H2B信号出现错配标记(图一F–H)。
哺乳动物细胞骨架成分α-微管蛋白和β-肌动蛋白是纳米管中普遍存在的特征。诱导有丝分裂错误后,RPE-1细胞中由微管和肌动蛋白组成的纳米管内,可清晰观察到高灵敏度DNA染料YOYO-1阳性染色的点状DNA信号(图一I)。为确认含DNA的纳米管有别于有丝分裂缺陷产生的染色质桥,在RPE-1细胞中表达多西环素(DOX)诱导的显性负性TRF2蛋白(dnTRF2),发现间期染色质桥上的DNA呈细长外观(图一J),形态与纳米管内细胞质DNA运输的点状信号不同。以上数据表明,通过纳米管连接在人类细胞中可以实现细胞间DNA转移。
为确定其他的有丝分裂扰动能否引发细胞间DNA转移,研究者通过瞬时耗竭纺锤体组装检查点蛋白Mad2或使用微管聚合抑制剂诺考达唑诱导长时间有丝分裂阻滞。发现两种处理的RPTEC细胞均表现出染色质点穿越纳米管,以及在受体细胞的细胞核与细胞质之间产生错配标记的H2B信号(图二A)。为检验间期DNA损伤,使用CRISPR-Cas9在染色体3p上造成一个位点特异性的DNA双链断裂(DSB),产生一个无着丝粒的染色体臂,如果在未修复的情况下进入有丝分裂,就会错误分离形成微核。结果同样显示,DSB引发了DNA在纳米管中传递,以及受体细胞核与细胞质之间的H2B标记错配(图二B)。将RPTEC暴露于低剂量2 Gy电离辐射(IR)下,在整个基因组中产生随机DSB,同样促进了错配H2B信号的出现(图二B)。
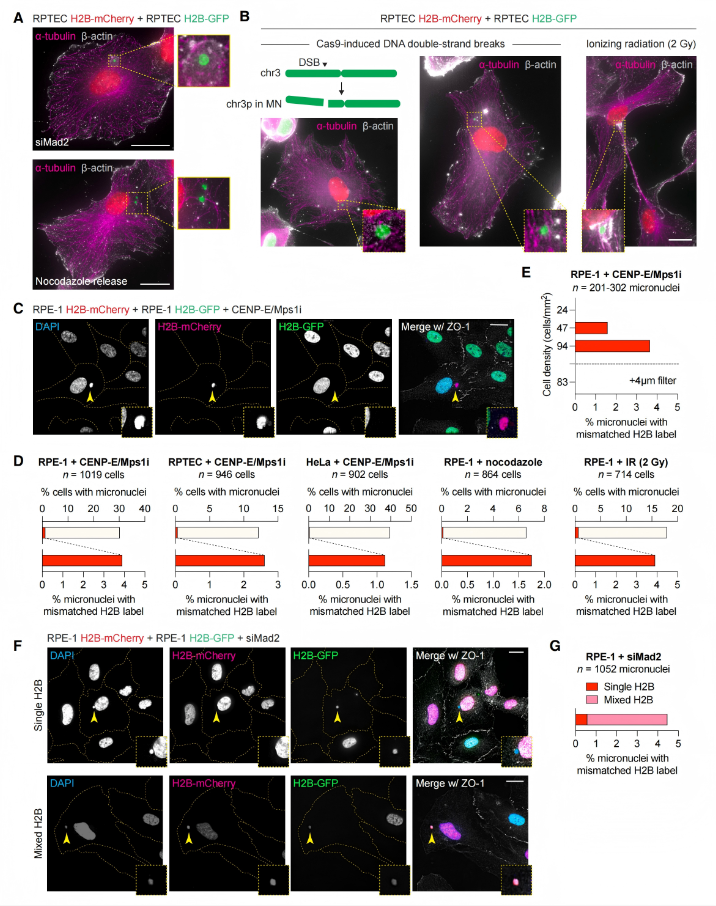
图二 多种诱导基因组不稳定的方式都能促进细胞间DNA转移[10]
随后,研究者量化了诱导有丝分裂错误后的可检测DNA转移事件频率。利用紧密连接蛋白ZO-1免疫染色勾勒外细胞膜边界,检查错配H2B标记的细胞核和微核(图二C)。经有丝分裂抑制剂处理后,共计对2,867个RPE-1、 RPTEC 和HeLa细胞的分析显示,1.1%~3.9%的微核存在错配标记的细胞质H2B信号(图二D)。其他导致微核基因组不稳定的方法,如从诺考达唑诱导或IR暴露,在RPE-1细胞中引发了相似频率范围内的错配H2B信号(图二D)。值得注意的是,DNA转移频率随着细胞密度降低而相应下降,这与直接细胞间接触是纳米管初始形成所需相一致(图二E)。此外,加入4 μm孔径的Transwell过滤器来物理分隔H2B-mCherry和H2B-GFP标记的RPE-1细胞群体后,DNA转移事件被完全消除(图二E)。为确定供体组蛋白在DNA复制过程中是否被受体组蛋白取代,在Mad2耗竭3天后的长期共培养物中检查错配的细胞质H2B信号。结果显示大多数(87.2%)转移的微核随时间获得了混合的mCherry和GFP标记的H2B信号(图二F和G),表明在DNA合成过程中整合了受体的组蛋白。
接下来,研究者探究细胞间DNA转移是否跨越细胞类型。在人诱导多能干细胞(iPSC)中进行实验,这些细胞的微核形成率较低。分别构建内源表达核膜标志蛋白Lamin B1与mTagRFP融合蛋白(Lamin B1-RFP)和内源表达α-微管蛋白与mEGFP融合蛋白(α-tubulin-GFP)的iPSC,共培养后检查受体α-tubulin-GFP iPSC中是否存在Lamin B1-RFP标记的细胞质DNA。结果显示,在294个含微核的α-tubulin-GFP iPSC中,9.2%的微核含有Lamin B1-RFP(图三A和B),表明在未受干扰的条件下,iPSC可以自发性地发生细胞间DNA转移。
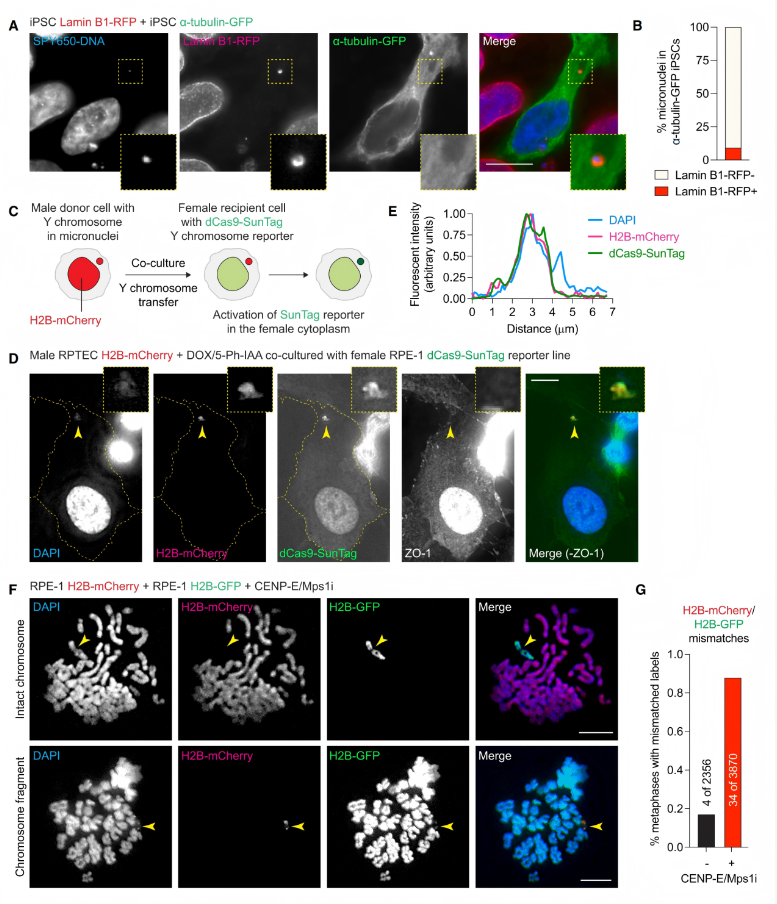
图三 转移的DNA进入受体细胞质,通过有丝分裂与宿主染色体混合[10]
为进一步确认转移的DNA被递送至受体细胞的细胞质中,研究者在雌性RPE-1细胞中构建了Y染色体特异性报告基因,由核酸酶缺陷型dCas9-SunTag报告系统靶向Y染色体长臂DYZ1重复序列。H2B-mCherry雄性RPTEC作为供体,通过着丝粒失活诱导出Y染色体微核。二者共培养结果显示,受体细胞质中出现与DAPI和H2B-mCherry共定位的dCas9-SunTag信号(图三D和E),表明Y染色体微核已成功从供体RPTEC转移至雌性受体RPE-1细胞质中。
为监测转移后的微核流向,将H2B-mCherry和H2B-GFP RPE-1细胞共培养,经有丝分裂抑制剂处理,在单个细胞周期后的中期染色体铺片中分析是否存在错配的H2B标记。示例显示有明显着丝粒的H2B-GFP供体染色体,位于H2B-mCherry受体中期染色体内;以及H2B-GFP 受体染色体中存在H2B-mCherry供体染色体片段(图三F)。经统计,与对照组相比,经有丝分裂抑制剂处理后,中期染色体错配的检测频率有所增加(图三G)。以上数据表明,细胞间DNA转移可跨越不同细胞类型,转移的供体DNA进入受体细胞质中,并在有丝分裂过程中与宿主染色体相混合。
最后,研究者探究转移的DNA能否长期遗传并具有功能。利用先前经过基因改造的雄性 DLD -1结直肠癌细胞作为供体细胞,其Y染色体着丝粒可通过 CENP-A替换实现失活[11]。这一雄性供体细胞在Yq11.221基因座含有新霉素抗性(neoR)基因,能抵御抗生素G418药筛,并被修饰表达mNeonGreen[12]。雌性HeLa受体细胞表达了mCherry及能抵御博来霉素药筛的zeoR基因(图四A)。二者共培养添加DOX/IAA持续三天,以诱导雄性供体细胞中Y染色体错误分离形成微核。随后G418和博来霉素联合药筛四周后,扩增抗性细胞。通过荧光激活细胞分选(FACS)出二种单荧光细胞群体, 以及一个mCherry⁺/mNeonGreen⁺群体,表明发生了自发性的细胞-细胞融合(图四A和B)。通过DOX/IAA诱导Y染色体错误分离后,mCherry⁺细胞群体相比对照组增加了多达55倍(图四B和C),表明供体Y染色体微核已进入雌性受体细胞并赋予其G418抗性。
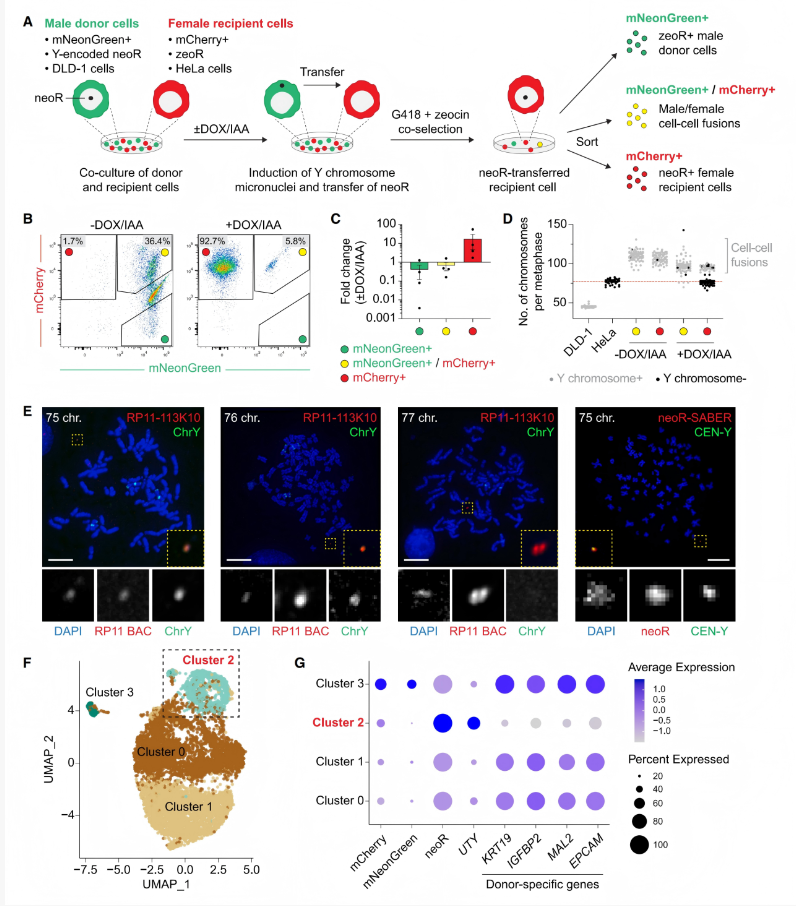
图四 转移的DNA片段将可遗传的表型特征赋予受体细胞[10]
FACS分选后第七天对总染色体数的分析显示,预期的细胞-细胞融合亚群(双荧光阳性)的核型表现出接近雄性供体和雌性受体细胞染色体数目之和(图四D)。染色体特异性荧光探针的中期FISH证实含有一条完整的Y染色体拷贝。为确定neoR基因座的物理基因组位置,研究者使用靶向Yq11.221基因座的细菌人工染色体(BAC)探针和Y染色体特异性涂染探针,以及直接覆盖neoR表达盒及其约15 kb侧翼Yq11.221序列的合成寡核苷酸探针,并通过交换反应信号扩增(SABER)进行扩增。对来自mCherry⁺细胞的中期铺片检查显示,存在Yq11.221基因座的单拷贝染色体外DNA(ecDNA)片段,利用BAC探针和SABER探针分别在中期染色体上检测到8/240(3.3%)和7/103(6.8%,图四E)。值得注意的是,Yq11.221来源的ecDNA仅在总染色体数与亲本雌性受体细胞接近的细胞中被检测到(图四D)。
为在单细胞分辨率下评估转录活性,对供体细胞和受体细胞与分离的mCherry⁺群体进行单细胞RNA测序(scRNA-seq)。在mCherry⁺群体中,scRNA-seq揭示了一个独特的亚群簇2,占细胞的11.9%(图四F)。该亚群含有Yq11.221基因座的转录本,包括neoR和UTY,同时缺乏供体富集基因的强表达(图四G)。尽管在簇2的一小部分细胞中可检测到一些供体相关转录本,但其表达水平显著低于供体群体。相比之下,簇0、1和3高水平共表达供体和受体特异性基因(图四G),这与先前通过细胞遗传学观察到的细胞-细胞融合亚群一致。以上数据表明,供体转移的DNA序列在多次传代细胞中仍得以维持,且支持了功能性基因表达,进而赋予受体细胞新的表型性状。
综上所述,该研究证明了哺乳动物细胞可以通过接触依赖的纳米管连接,将自身基因组中胞质区的受损片段直接传递给邻近细胞。这种行为与基因组不稳定性的来源无关,从有丝分裂过程中的整条染色体分离错误到全基因组DNA损伤均能发生。这些被转移的DNA片段能够在受体细胞中持续存在并发挥功能,从而赋予其可遗传的表型变化。该研究挑战了“人类体细胞基因组独立演化”的传统认知,揭示了一种类似细菌“水平基因转移”的机制,为理解癌症进展与转移、肿瘤治疗的耐药性传播等提供了全新视角。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:甜点
新媒体运营:suway
参考文献
1. Sablina AA, Ilyinskaya GV, Rubtsova SN, Agapova LS, Chumakov PM, Kopnin BP: Activation of p53-mediated cell cycle checkpoint in response to micronuclei formation. J Cell Sci 1998, 111 ( Pt 7):977-984.
2. Hatch EM, Fischer AH, Deerinck TJ, Hetzer MW: Catastrophic nuclear envelope collapse in cancer cell micronuclei. Cell 2013, 154(1):47-60.
3. Krupina K, Goginashvili A, Baughn MW, Moore S, Steele CD, Nguyen AT, Zhang DL, Koeppel J, Trivedi P, Malhotra A et al: Chromothripsis and ecDNA initiated by N4BP2 nuclease fragmentation of cytoplasm-exposed chromosomes. Science 2025, 390(6778):1156-1163.
4. Engel JL, Zhang X, Wu M, Wang Y, Espejo Valle-Inclán J, Hu Q, Woldehawariat KS, Sanders MA, Smogorzewska A, Chen J et al: The Fanconi anemia pathway induces chromothripsis and ecDNA-driven cancer drug resistance. Cell 2024, 187(21):6055-6070.e6022.
5. Hu Q, Espejo Valle-Inclán J, Dahiya R, Guyer A, Mazzagatti A, Maurais EG, Engel JL, Lu H, Davis AJ, Cortés-Ciriano I et al: Non-homologous end joining shapes the genomic rearrangement landscape of chromothripsis from mitotic errors. Nat Commun 2024, 15(1):5611.
6. Trivedi P, Steele CD, Au FKC, Alexandrov LB, Cleveland DW: Mitotic tethering enables inheritance of shattered micronuclear chromosomes. Nature 2023, 618(7967):1049-1056.
7. Mackenzie KJ, Carroll P, Martin CA, Murina O, Fluteau A, Simpson DJ, Olova N, Sutcliffe H, Rainger JK, Leitch A et al: cGAS surveillance of micronuclei links genome instability to innate immunity. Nature 2017, 548(7668):461-465.
8. Hu Y, Sun HX, Sakurai M, Luo Z, Jones AE, Cheng T, Huang J, Liu L, Zheng C, Li J et al: RNA innate immunity constitutes a barrier for interspecies chimerism. Cell 2026, 189(1):23-33.e16.
9. Miao L, Lu Y, Nusrat A, Fan G, Zhang S, Zhao L, Wu CL, Guo H, Huyen TLN, Zheng Y et al: Tunneling nanotube-like structures regulate distant cellular interactions during heart formation. Science 2025, 387(6739):eadd3417.
10. Maurais EG, Mazzagatti A, Lin YF, Narozna M, Hu Q, Dahiya R, Santiago-Ferrer D, Herlihy CP, Krebs M, Pateraki N et al: Genome instability triggers intercellular DNA transfer between human cells. Cell 2026, 189(15):4548-4561 e4514.
11. Ly P, Teitz LS, Kim DH, Shoshani O, Skaletsky H, Fachinetti D, Page DC, Cleveland DW: Selective Y centromere inactivation triggers chromosome shattering in micronuclei and repair by non-homologous end joining. Nat Cell Biol 2017, 19(1):68-75.
12. Ly P, Brunner SF, Shoshani O, Kim DH, Lan W, Pyntikova T, Flanagan AM, Behjati S, Page DC, Campbell PJ et al: Chromosome segregation errors generate a diverse spectrum of simple and complex genomic rearrangements. Nat Genet 2019, 51(4):705-715.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!