技术分享:基于DIA-MS的人类组织蛋白质组定量图谱
一幅详尽的具有组织分辨率的人类蛋白质组定量图谱对于深入理解人类生物学和疾病至关重要。尽管现有转录组数据库如ArrayExpress[1]、RNA-Seq Atlas[2]和BioGPS[3]提供了组织RNA表达的初步注释,但mRNA水平与蛋白质表达丰度的关联性相对有限,而蛋白质才是主要的功能性分子和可被开发的药物靶点。
人类蛋白质图谱(The Human Protein Atlas,HPA)于2005年启动,最初通过整合基于免疫组织化学技术的蛋白质组学数据,涵盖了健康组织和癌变组织的情况。截至2015年,HPA已整合了来自32种健康组织类型的转录组数据以及基于20,456种抗体、源自44种健康组织类型的蛋白质组学数据。尽管抗体法在提供蛋白质定位信息方面具有优势,但其半定量的特性限制了数千种蛋白质的可靠定量分析,尤其是那些缺乏有效抗体的蛋白质。
相比之下,质谱分析(MS)为定量蛋白质组学测量提供了一种全面、多参数且无偏倚的替代方法。2014年,基于质谱的两项人类蛋白质组草图报告称,约85%的人类基因编码蛋白质在涵盖约30种组织类型和细胞系中被鉴定出来[1, 2],但检测组织范围有限,且缺少健康与癌变组织的系统比较。诸如癌症基因组图谱TCGA、国际癌症基因组联盟和临床蛋白质组肿瘤分析联盟CPTAC等虽提供了特定肿瘤类型的大量多组学数据集,但跨肿瘤类型的比较仍存在困难。数据非依赖性采集质谱(DIA-MS)[4]是一种广泛组织覆盖、高深度、高通量的蛋白质组学技术,有助于全面描绘不同人类组织和状态下的蛋白质组图谱。
2026年8月,Nature期刊发表了一项研究,利用数据非依赖性采集质谱(DIA-MS)技术,构建了一份全面的人类组织蛋白质组定量图谱,详细表征了2,856个样本中13,609种蛋白质的人类组织定量分布。数据集覆盖范围包括58种健康成人组织、251种特定组织亚型以及25种癌症类型,几乎涵盖了所有实体组织、体液和主要癌症类型。该图谱资源描绘了跨组织类型和生理状态的蛋白质组空间分布轨迹,为发育过程和肿瘤进展提供了蛋白质初步注释。此外,跨组织类型和状态之间的定量蛋白质组学比较,有助于揭示器官特异性毒性、识别可再利用的抗癌候选药物,并优先确定癌症的治疗靶点[5]。
首先,研究团队共收集了2,856份样本,分别来自9例成人捐献者、8名健康成人参与者、9例胎儿捐献者以及1,015名癌症患者。通过整合人类谱图以及来自非人物种的诱捕谱图,构建了涵盖15,332个蛋白质484,615个肽谱的质谱谱图库,进而对上述样本的DIA原始数据进行检索。最终在3,005个MS文件中定量到13,609种蛋白质,蛋白水平的全局错误发现率(FDR)为0.1%(图一)。
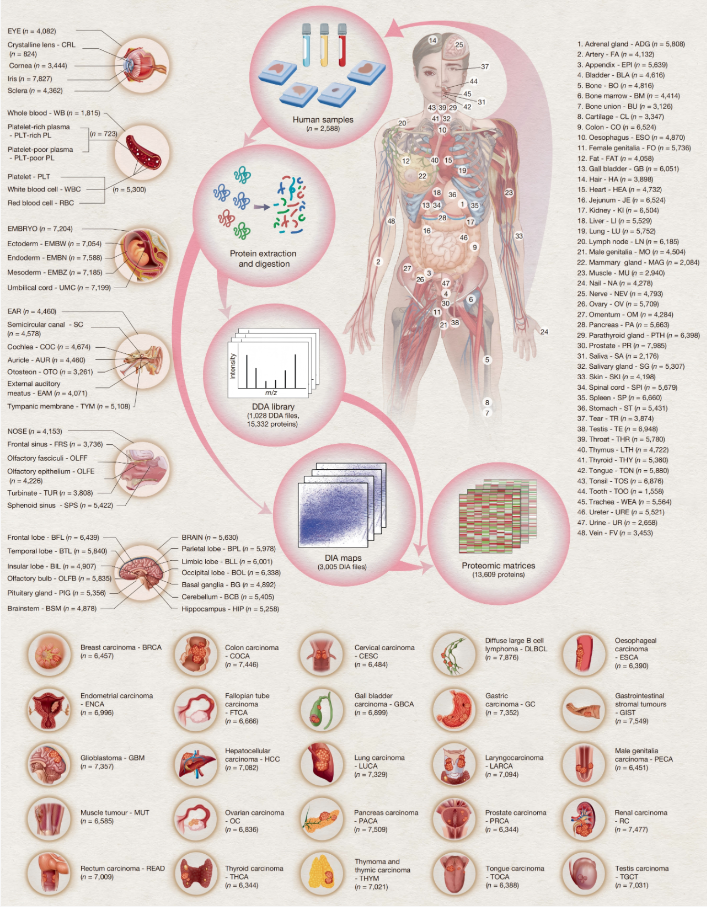
图一 人类蛋白质组数据样本类型汇总[5]
该蛋白质组在不同组织和样本类型间表现出显著的异质性(图二a),重复样本间重现性较高且批次效应极小,表明整体数据质量较高。t-SNE分析显示,胎儿(F)、肿瘤(T)、配对非肿瘤(NT)和正常(健康)成人(N)样本沿t-SNE 1轴的相反方向有序排列(F–T–NT–N,图二a),反映出组织分化的程度。但脑和肝脏的肿瘤及其配对非肿瘤组织并未遵循这种F–T–NT–N排列模式,而是各自聚类在一起(图二b)。伪时间分析显示,脑组织在恶性转化过程和发育过程都表现出异常的蛋白质组稳定性,特征是伪时间值较低,且所有四种状态间的变异幅度极小,这与大脑发育过程中功能受限的基因表达情况相一致。相反,肝肿瘤和非肿瘤样本则聚集在伪时间值较高的区域,与胎儿肝脏和健康成人肝脏的位置相距甚远,这可能归因于肝脏在应对多变环境因素时的适应性可塑性。
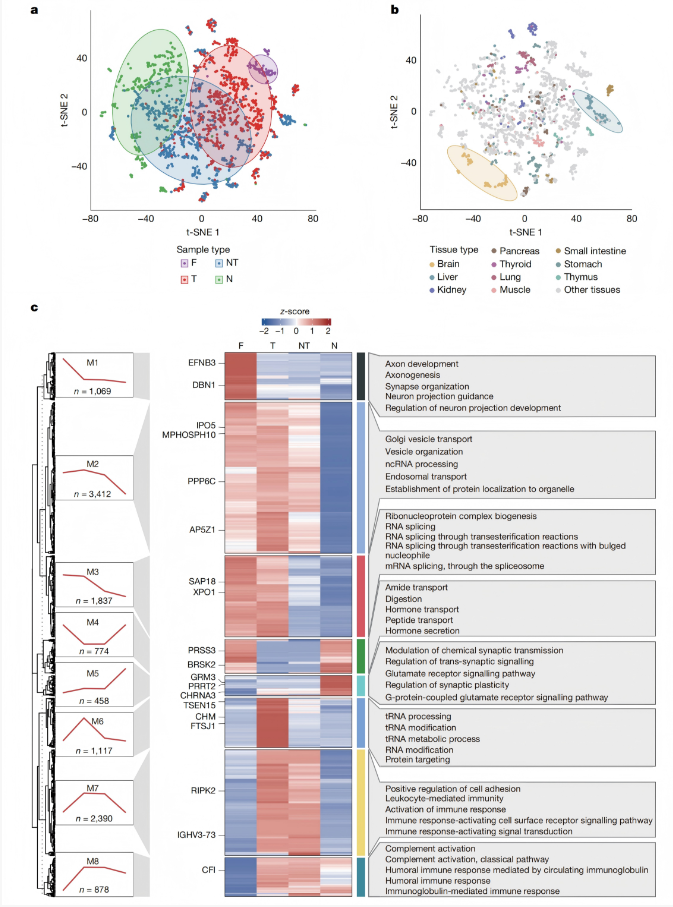
图二 组织发育与肿瘤发生中的蛋白质组转变[5]
为了阐明支撑这一趋势的具体蛋白质和生物学过程,研究者对所有样本进行无监督聚类分析,并识别出八个具有一致表达模式的独特蛋白质模块,其中模块3高度富集于RNA剪接过程,呈现F–T–NT–N下降趋势(图二c),反映其在器官发育和肿瘤发生中的关键作用。模块8在体液免疫应答过程中显著富集,沿F–T–NT–N逐渐上调(图二c),可能反映了产前和肿瘤样本中存在体液免疫功能的受抑制或不完全。分别对肝脏和脑样本进行无监督聚类分析显示,尽管在F–T–NT–N趋势中也观察到RNA剪接减少和免疫激活增加,但组织特异性功能,如脑样本中的突触传递通路和肝脏样本中的代谢活动,同样被显著增强。
接下来,研究者解析组织特异性表达蛋白质。比较了各组织类别内部及相互之间的欧几里得距离和关联系数,将表现为较高组内异质性的组织如眼睛和软骨,进一步细分为特定的亚型,最终形成了74种经过精细分类的组织类型,使得各自类别内的距离均显著较小、关联度更高。随后,根据HPA标准[6]将蛋白质分为六类:未检测到、组织富集、群体富集、在所有组织中表达、组织增强和混合型(图三a)。其中,脑所含的组织富集型蛋白质数量最多,而晶状体则显示出组织富集型蛋白质在所有鉴定蛋白的总丰度比值最高(图三a)。基于组织富集型和群体富集型蛋白的层次聚类分析,可将生理相关的样本归为一类,例如脑和脊髓(图三a)。但也有一些明显的例外,例如胰腺与结缔组织(如骨、肌腱和软骨)聚类在一起,这可能反映了与年龄相关的退化。类似地,气管与唾液腺聚类在一起,可能是因为气管取样区域中腺上皮细胞分布较为显著。
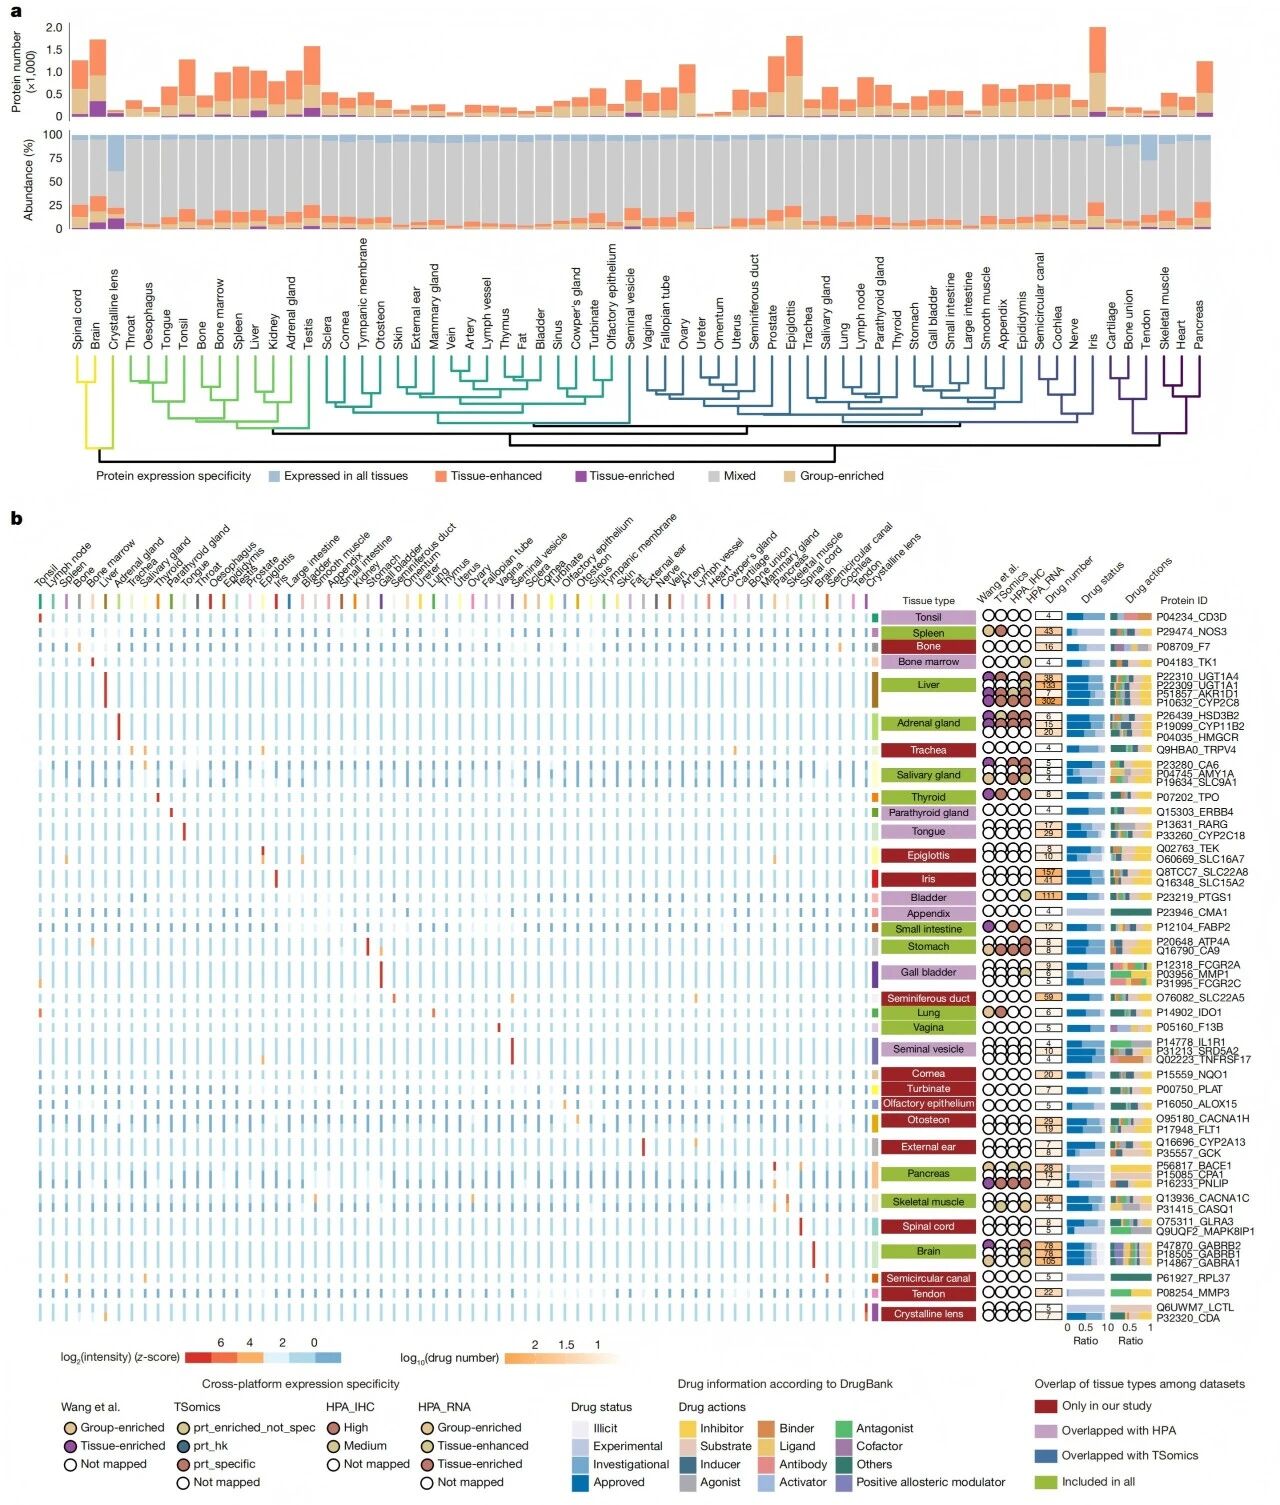
图三 蛋白质和药物靶点的组织分布汇总[5]
在已鉴定的1717个组织富集型蛋白质中,有749个先前已被报道在相应组织类型中富集。其中,666个在蛋白质水平上得到支持,并且426个蛋白在HPA的RNA测序数据中显示出一致富集。在与HPA重叠的36种组织中,识别出832个独特蛋白,其中122个仅见于HPA的RNA数据。更有480个组织富集型蛋白质分布于24种组织类型,此前并未被覆盖,凸显了该研究的深度和广度。其中,PANX3被鉴定为耳蜗富集的最高丰度蛋白,在HPA数据集中被记录为未检测到。
由于组织特异性药物靶点表达可能导致脱靶毒性[7],研究者将组织富集型蛋白列表与DrugBank数据库中的药物靶点进行比对,在34种组织中鉴定出402个组织富集型药物靶点,对应2,598种药物。其中,在肝脏的数量最多,与药物性肝损伤高发一致(图三b)。例如,肝脏高度富集的细胞色素P450 2C8(CYP2C8)是302种药物的靶点,包括抗病毒药、抗糖尿病药和抗癌药(图三b)。这些药物大多作为抑制剂和底物发挥作用,包括吉非罗齐作为CYP2C8的不可逆抑制剂。因此,吉非罗齐与经CYP2C8代谢的药物联合用药时,可通过使药物血浆浓度增加八至十倍而诱发严重毒性。临床上,当吉非罗齐与他汀类药物联用时表现为横纹肌溶解和急性肾损伤,或与抗糖尿病药联用时表现为严重低血糖。此外,肝细胞持续的代谢负担加剧了药物性肝损伤的风险,形成代谢受损与毒性增加的有害循环[7]。
通过比较组织富集药物靶点与流行病学研究和临床病例中报告的不良反应,重点关注除主要靶器官或肝脏以外的组织,来研究潜在的脱靶器官效应。确定了两项流行病学研究,将体表局部使用的广谱抗菌剂三氯生暴露与甲状腺功能障碍相关联。一项研究表明,暴露于三氯生影响甲状腺自身免疫和稳态;另一项研究报告,母体三氯生暴露与母体游离甲状腺素水平和新生儿三碘甲状腺原氨酸水平呈负相关。三氯生靶向甲状腺过氧化物酶,该酶在本研究及两项已发表的基于质谱的蛋白质组草案中均被富集在甲状腺中(图三b)。甲状腺过氧化物酶催化甲状腺激素合成,对甲状腺稳态至关重要,而其异常可影响甲状腺自身免疫和激素水平。这些发现强调了绘制药物靶点组织特异性分布图谱对于阐明脱靶不良反应的分子病因学的实用性。
接着,研究者探究泛癌蛋白质的变化。使用线性混合模型对配对肿瘤和非肿瘤蛋白质组数据进行比较分析,在25种肿瘤类型中鉴定出8,940个差异表达蛋白(DEP)。其中,结肠癌、直肠癌和睾丸癌的DEP数量最多,而胶质母细胞瘤最少,这与基于全局蛋白质组的t-SNE图中脑肿瘤和癌旁样本的聚类结果一致(图二b)。大多数上调的DEP是癌症特异性或两种癌症共有的。共有33个DEP在超过20种癌症类型中上调,例如肿瘤发生驱动因子MCM4和NUDT1(MTH1),表明保守的泛癌蛋白质组重塑可能是肿瘤发生的基础。
在25种肿瘤类型的DEP中,有2,878个是肿瘤特异性的,即仅在一种特定肿瘤类型中显著上调或下调。肝细胞癌(HCC)的肿瘤特异性DEP最多,其次是弥漫性大B细胞淋巴瘤(DLBCL)和胃肠道间质瘤(GIST),而食管癌最少(图四a)。大多数HCC特异性DEP是下调的,并富集于代谢通路。值得注意的是,突触信号传导相关在GIST特异性上调DEP中富集,例如Cajal间质细胞的标志物KIT和ANO1[8]在GIST特异性上调,这与GIST源自Cajal间质细胞相吻合,表明DEP可反映其特定的细胞起源。基于靶向质谱的定量分析验证了CPT1C和FXYD6在GIST中的癌症特异性上调(图四c),这两种蛋白主要在神经元中表达,证实了GIST中增强的神经元特性。在肿瘤特异性DEP中,有131个在相应的正常组织中为组织富集型蛋白,代表局部富集的差异表达蛋白(LEDEP)。下调的肿瘤特异性LEDEP反映了特化组织功能的丧失,与从F–T–NT–N趋势推断的肿瘤去分化一致(图二a)。例如,RBP2和PLS1仅在小肠癌中被下调,LIPF和GKN1仅在胃癌中被下调,而外分泌标志物CELA2A、CPA1和PNLIP在胰腺癌中被下调(图四g)。上调的LEDEP主要见于睾丸癌,如TSPY2(图四g),表明利用了内在的生殖细胞增殖程序。
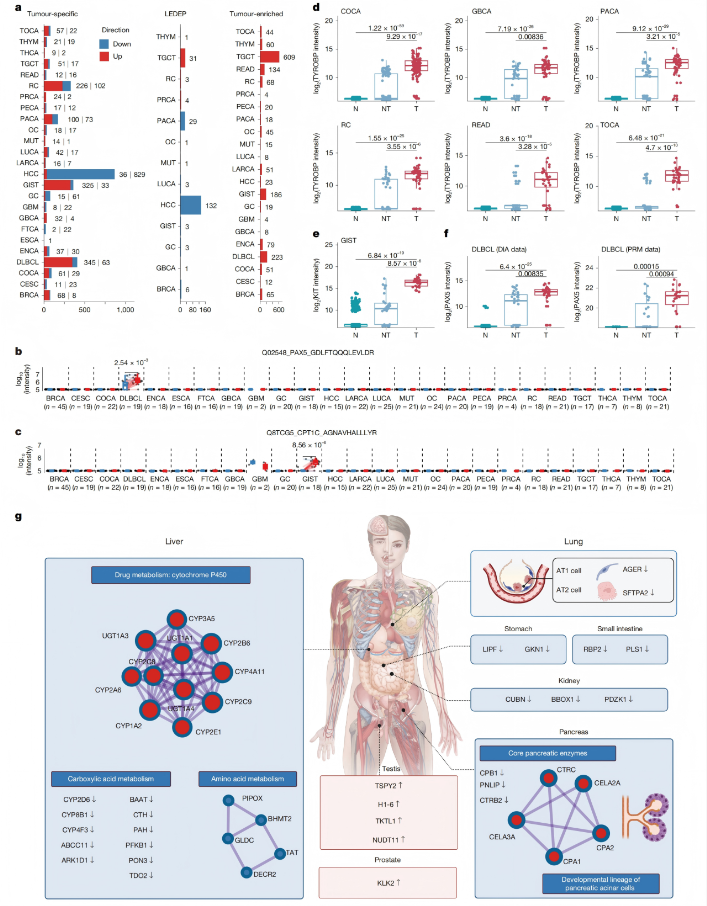
图四 肿瘤特异性蛋白质特征[5]
最后,研究者尝试展示该数据资源在药物靶点优先排序中的应用。其一,研究者检视肿瘤间共有的上调DEP的治疗相关性。筛选其中77个被36种生物分子药物靶向的DEP,这些药物主要为受体酪氨酸激酶(RTK)抑制剂,已在2,084项临床试验中接受评估。值得注意的是,针对子宫内膜癌(ENCA)获批或在研的药物数量远少于乳腺癌(BRCA),表明未满足的治疗需求。戈沙妥珠单抗是一种抗体药物偶联物,将人源化抗TROP2抗体与TOP1抑制剂SN-38结合,用于治疗三阴性乳腺癌。值得注意的是,TROP2和TOP1在ENCA和BRCA中均呈协同上调,提示戈沙妥珠单抗可能在ENCA中有效。这一推断得到II期NCT04251416临床试验的支持,以及将在III期NCT06486441中评估。类似地,PARP1和PARP2抑制剂奥拉帕尼已获批用于卵巢癌和BRCA,由于PARP1在多种妇科癌症,包括BRCA、卵巢癌、ENCA和宫颈癌中均上调,提示其可能对ENCA也具有治疗潜力。这一推断得到了I期和II期临床试验积极结果的进一步佐证。
其二,研究者将数据集与药物敏感性数据和CRISPR基因必需性数据进行整合,以优先排序候选蛋白靶点和药物。具体而言,将上调的DEP映射到ProCan-DepMapSanger蛋白质组数据集[9],将蛋白质丰度与泛癌细胞系中的半数抑制浓度(IC50)值和CRISPR–Cas9基因必需性相关联,共鉴定出靶向9个DEP的35种药物(图五b),主要为RTK。鉴于RTK在基因和蛋白质水平上频繁发生变异(图五a),研究者将重点聚焦于RTK。优先选择同时满足以下条件的RTK:1)在肿瘤中显著上调;2)更高的蛋白强度预示着更高的药物效力(图五b)。结果发现,MET和BCL2L1的高表达与结直肠癌细胞系中赛沃替尼、替泊替尼和美瑞替尼(MET抑制剂)以及navitoclax(BCL2家族抑制剂)的效力增加相关。在直肠癌中,靶向MET的治疗可行性进一步得到MET蛋白水平与CRISPR基因必需性之间相关性的支持,较高的丰度对应着更大的依赖性(图五c)。
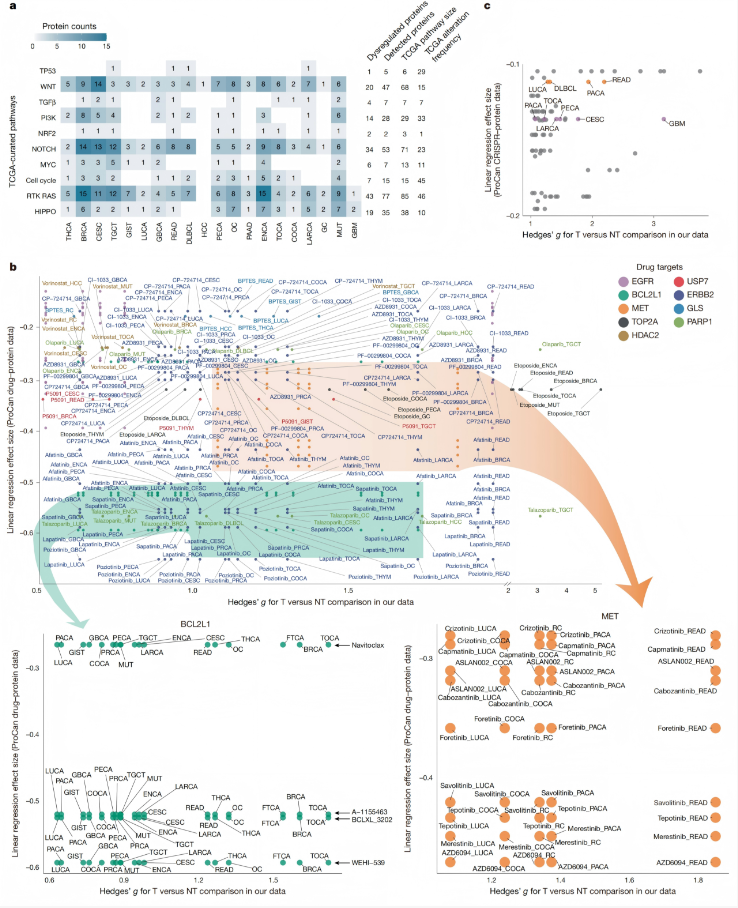
图五 潜在药物靶点及药物再利用[5]
其三,研究者旨在通过优先选择相对于配对非肿瘤组织和所有正常组织均在肿瘤中显著上调的肿瘤富集型蛋白,来最大程度减少不良效应。鉴定出41种独特的定位于细胞膜的肿瘤富集型蛋白。其中一些已被临床批准的抗体药物偶联物靶向,例如CD79B[10],支持了这一优先排序策略的有效性。TYROBP是一种跨膜信号传导接头蛋白,在结直肠癌、胃癌、肾癌和胰腺癌等十种肿瘤类型中被鉴定为肿瘤富集(图四d),是潜在的共享抗体药物偶联物靶点,但其髓系表达需进行毒性评估。KIT被鉴定为GIST特异性和GIST富集(图四e),表明靶向GIST中异常的ICC样信号具有潜在的治疗潜力。靶向蛋白质组分析证实PAX5在DLBCL中为肿瘤特异性和肿瘤富集型(图四b和f)。有证据表明,在DLBCL临床前模型中,抑制PAX5增强了BTK阻断剂的疗效[11],凸显了其作为该恶性肿瘤治疗靶点的潜力。以上结果展示了从蛋白质组数据到药物再利用和靶点发现的有效路径,发现其新的治疗用途或适应症。
综上所述,该研究呈现了一个具有解剖分辨率的人类蛋白质组图谱,涵盖胎儿、健康成人、肿瘤及配对非肿瘤组织四种病理生理状态下共计13,609个蛋白质的定量变化。该研究不仅描绘了健康状态下蛋白质的空间分布,更揭示了它们在疾病,尤其是癌症中的“行踪变化”,为理解生命过程和推动医学发展提供了全新的视角。该研究数据已通过公开数据库(https://db.prottalks.com/)向全球开放,便于查询某个蛋白质在人类58种组织中的表达丰度,以及某种癌症中哪些蛋白质发生了改变。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:甜点
新媒体运营:suway
参考文献
1. Brazma A, Parkinson H, Sarkans U, Shojatalab M, Vilo J, Abeygunawardena N, Holloway E, Kapushesky M, Kemmeren P, Lara GG et al: ArrayExpress--a public repository for microarray gene expression data at the EBI. Nucleic Acids Res 2003, 31(1):68-71.
2. Krupp M, Marquardt JU, Sahin U, Galle PR, Castle J, Teufel A: RNA-Seq Atlas--a reference database for gene expression profiling in normal tissue by next-generation sequencing. Bioinformatics 2012, 28(8):1184-1185.
3. Su AI, Wiltshire T, Batalov S, Lapp H, Ching KA, Block D, Zhang J, Soden R, Hayakawa M, Kreiman G et al: A gene atlas of the mouse and human protein-encoding transcriptomes. Proc Natl Acad Sci U S A 2004, 101(16):6062-6067.
4. Ludwig C, Gillet L, Rosenberger G, Amon S, Collins BC, Aebersold R: Data-independent acquisition-based SWATH-MS for quantitative proteomics: a tutorial. Molecular systems biology 2018, 14(8):e8126.
5. Yue L, Jiang W, Li S, Luo M, Fan N, Zhan X, Sun R, Cheng H, Xue Z, Liu T et al: Spatial distribution of the proteome in the human body and in cancers. Nature 2026, 656:227-236.
6. Uhlen M, Fagerberg L, Hallstrom BM, Lindskog C, Oksvold P, Mardinoglu A, Sivertsson A, Kampf C, Sjostedt E, Asplund A et al: Proteomics. Tissue-based map of the human proteome. Science 2015, 347(6220):1260419.
7. Santos R, Ursu O, Gaulton A, Bento AP, Donadi RS, Bologa CG, Karlsson A, Al-Lazikani B, Hersey A, Oprea TI et al: A comprehensive map of molecular drug targets. Nat Rev Drug Discov 2017, 16(1):19-34.
8. Hannigan KI, Bossey AP, Foulkes HJL, Drumm BT, Baker SA, Ward SM, Sanders KM, Keef KD, Cobine CA: A novel intramuscular Interstitial Cell of Cajal is a candidate for generating pacemaker activity in the mouse internal anal sphincter. Sci Rep 2020, 10(1):10378.
9. Goncalves E, Poulos RC, Cai Z, Barthorpe S, Manda SS, Lucas N, Beck A, Bucio-Noble D, Dausmann M, Hall C et al: Pan-cancer proteomic map of 949 human cell lines. Cancer Cell 2022, 40(8):835-849 e838.
10. Davis JA, Shockley A, Herbst A, Hendrickson L: Polatuzumab Vedotin for the Front-Line Treatment of Diffuse Large B-Cell Lymphoma: A New Standard of Care? J Adv Pract Oncol 2023, 14(1):67-72.
11. Oien DB, Sharma S, Hattersley MM, DuPont M, Criscione SW, Prickett L, Goeppert AU, Drew L, Yao Y, Zhang J et al: BET inhibition targets ABC-DLBCL constitutive B-cell receptor signaling through PAX5. Blood Adv 2023, 7(17):5108-5121.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!