技术分享:肌球蛋白的机械力重塑F-肌动蛋白构象,驱动力敏感蛋白质识别
细胞通过细胞骨架连接的黏附结构(adhesion)与周围环境进行机械互作,使其能够感知指导发育、驱动癌症等疾病的物理信号[1]。肌球蛋白(myosin)能够水解ATP产生收缩力,作用于与细胞质骨架F-肌动蛋白(F-actin)相连的跨膜黏附复合物,使细胞与所处组织微环境进行机械交互。肌动蛋白-肌球蛋白复合物的收缩对细胞迁移、细胞分裂以及多细胞组织动态至关重要,这些是正常形态发生和组织稳态所需的基本过程,而在发育性疾病和癌症中往往出现失调[2]。除塑造细胞和组织外,收缩力还促进将机械信号转化为调控细胞行为的生化信号通路[3]。然而,在蛋白质结构层面上,这些收缩力如何启动下游机械信号转导的机制仍不清楚。
细胞骨架不仅作为产生机械力的结构基础,还通过机械调控F-actin与肌动蛋白结合蛋白(ABP)之间的相互作用来介导力信号转导[4]。F-actin与经典ABP的结合可受多种因素调节,包括F-actin组装和解聚的调节因子、交联剂和细胞黏附蛋白。其中,关键的细胞-细胞黏附蛋白α-连环蛋白(α-catenin)在活跃的肌球蛋白产生机械力时,特异性显示出与F-actin结合增强[5]。F-actin具有内在的结构多态性,并在与ABP结合时表现出特定的构象,表明作用力可以调节F-actin的结构以结合ABP [6]。对F-actin亚基结构动态的间接报告以及对收缩肌纤维的X射线衍射研究均表明,在肌球蛋白活性存在下F-actin会发生重排[6]。与此一致的是,有研究报道F-actin的化学修饰以及肌动蛋白突变,虽然可以结合肌球蛋白并激活ATP酶,但无法产生驱动力,提示肌动蛋白丝与肌球蛋白机械化学循环之间存在构象互惠性[7]。然而,目前尚不明确肌动蛋白-肌球蛋白界面的局部构象变化如何沿丝状结构长程传播,进而影响远端ABP结合位点。肌球蛋白产生的活性作用力是否也会实质性重塑F-actin结构,以及ABP分子如何通过结合接触来区分机械活性的F-actin结构状态,这些问题仍有待阐明。
2026年6月,Nature期刊报道了一项研究,发现肌球蛋白产生的力能引发肌动蛋白丝的结构变化,从而调节机械敏感黏附蛋白α-连环蛋白的结合。该研究发现肌动蛋白丝在富含斑联蛋白的细胞骨架-黏附界面处具有纳米尺度振荡曲率的正弦波状区域。是由肌球蛋白的压缩力驱动了正弦波状肌动蛋白丝区域的形成,诱发形成一种超螺旋构象。α-连环蛋白可识别这种结构,它沿单条链协同结合,优先结合在肌动蛋白亚基间距被拉长的特定位置,同时抑制旋转偏差以“校正”肌动蛋白丝晶格。这项研究将肌球蛋白的分子马达活动、肌动蛋白丝的结构重塑、以及α-连环蛋白的力学感知与细胞间通讯连接起来,为理解细胞如何通过细胞骨架-黏附复合物网络,将物理力学转化为生化信号提供了直接的分子基础[8]。
首先,研究者探究肌球蛋白收缩是否调节F-actin结构。选择斑联蛋白(zyxin)作为具有高机械负载的黏附标志物,检查表达zyxin-mNeonGreen和F-actin标记物F-tractin-mScarlet的PtK2细胞,且用Rho激活剂II处理细胞以增加收缩性。通过关联冷冻荧光显微成像技术,聚焦于细胞边缘富含zyxin的黏着斑区域(图一a)。对断层扫描图像进行语义分割后显示,肌动蛋白丝以两种形式存在:典型的线性束状排列和更加无序的网络结构,均表现出显著的弯曲形态(图一b)。部分丝状结构呈现出周期性区域,这些区域中弯曲度剧烈波动,跨度达300-400 nm(相当于约100-150个亚单位),且与典型的直线状肌动蛋白结构相延续(图一b)。对正弦波状丝束区域的定量分析显示,其在zyxin高表达的亚细胞区域中显著更丰富(图一c)。由于正弦波状丝束区域的形态结构与在对抗膜面发生推进性肌动蛋白聚合时发现的弯曲丝束的单平面曲率明显不同,研究者推测这些结构可能是由肌球蛋白力所特异引发的。
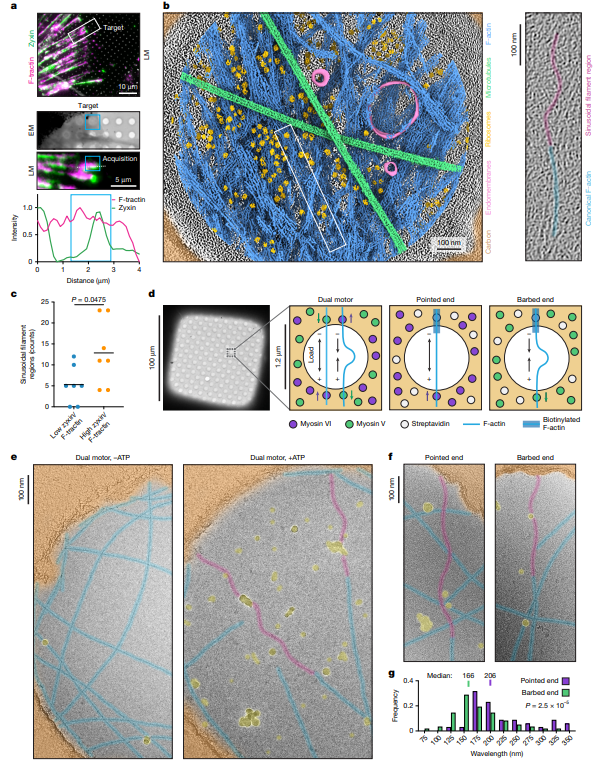
图一 肌球蛋白作用力引发出现正弦波状F-actin[8]
为探究肌球蛋白产生的力是否直接调节F-actin的构象,在多孔碳冷冻电镜基底上重构肌球蛋白活性,利用荧光显微镜分析力激活F-actin的结合。将正向(带刺端)定向的肌球蛋白V和负向(尖端)定向的肌球蛋白VI混合后固定在基底上。在ATP存在下,二者进行“拔河”比赛,对邻近表面的F-actin施加机械应力(图一d)。在单独存在肌球蛋白V或肌球蛋白VI的情况下,荧光显微镜证实F-actin在冷冻电镜基底上发生依赖ATP的滑动,而“双马达”条件则导致无序运动和断裂事件,这与肌丝受到机械负载一致(图一d)。将样本快速冷冻处理以抑制蛋白的动态活动,并通过冷冻电镜进行成像。观察到在产生活跃力的情况下, F-actin出现正弦波状区域,这些区域跨度达数百纳米,并与同一根丝状物中典型的直线状F-actin相延续(图一e)。
由于“双马达”系统预期会产生复杂的力分布,研究者评估单蛋白方向性的作用。产生在尖端含有生物素化区域的F-actin纤维。在表面锚定链霉亲和素的情况下,固定的F-actin纤维随后分别暴露于肌球蛋白VI或肌球蛋白V。冷冻电镜图像显示在两种条件下都形成了正弦波状区域(图一f)。负向定向(尖端)力条件下的正弦波状区域的中位波长显著长于正向定向(带刺端)力条件下的中位波长,但它们在形态上相似(图一g)。以上数据表明,正弦波状区域的形成是F-actin对肌球蛋白作用力产生的一种内在响应机制,且不受驱动蛋白运动方向性的影响。随后,研究者探究正弦波状区域的超微结构,对正向定向(带刺端)力和负向定向(尖端)力条件都进行cryo-ET。视觉检查表明正弦波状区域具有三维特征(图二a),但由于倾斜角度覆盖不完全导致z维度分辨率下降,无法进行详细分析。为克服这一限制,应用断层扫描降噪方法通过主成分分析分解进行直接纤维追踪和定量(图二b)。对纤维轨迹投影的对齐显示,尽管存在显著的形态变异性,每个纤维区域的振荡分量之间仍存在约四分之一波长的相位偏移(图二c和d),这与正弦波状区域采用围绕纤维轴螺旋旋转的超螺旋形态一致。超螺旋呈现椭圆形而非圆形横截面(图二c和d)。以上数据表明,肌球蛋白力可以直接生成具有不对称超螺旋形态的F-actin区域。
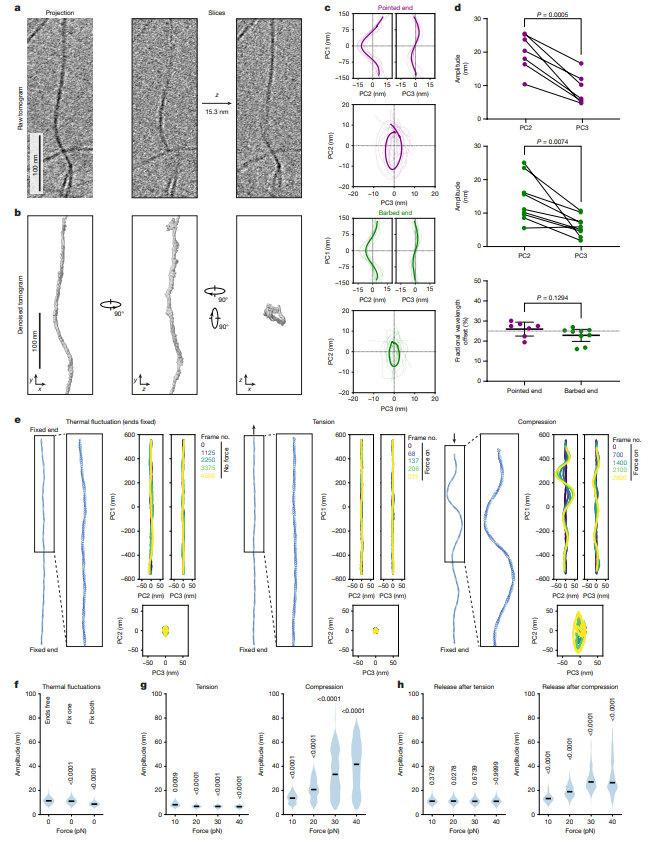
图二 压缩力产生F-actin超螺旋结构[8]
肌球蛋白的力产生过程是复杂的,其特点是在蛋白马达的力化学循环过程中,伴随着ATP水解偶联的F-actin结合与解离[9]。为评估肌球蛋白力产生的这些特征是否可能导致方向不敏感性F-actin超螺旋形成,研究者进行了粗粒化分子动力学模拟,其中肌动蛋白亚基被抽象为球形体(图二e和h)。首先进行无外力作用下热波动的对照模拟,分别模拟具有零个、一个或两个末端固定的肌动蛋白丝,以模拟不同程度的束缚或马达的参与程度(图二e左)。在所有这些条件下,均存在极少的超螺旋形成,表现为曲率振荡的波峰-波谷振幅较低(图二f)。随后进行实验模拟,将肌动蛋白丝的一端固定,另一端则施加拉力或压缩力。施加恒定压缩力几乎瞬时导致了超螺旋的形成,而施加恒定拉力则相反,使肌动蛋白丝拉直,从而抑制了热波动(图二e)。将力施加的持续时间限制在肌动蛋白丝断裂前的时间段内,定量分析力与超螺旋形成及其特性之间的关系。在所有力的大小下,拉力均有效抑制了超螺旋的形成,而压缩力的增加则增加了振荡的中位振幅和超螺旋的出现频率(图二g)。由于在模拟中的恒定拉力并不产生超螺旋,检测每种条件下力释放后肌动蛋白丝的动力学。超螺旋在压缩力释放后持续存在,其形态与施加恒定压缩期间产生的超螺旋相似(图二g和h)。相反,在拉力释放后,肌动蛋白丝松弛并表现出与热波动统计上无法区分的动态(图二f和h)。以上数据表明,由随机操作的蛋白马达组合产生的轴向压缩力可以产生F-actin超螺旋,且不依赖于蛋白马达的方向性,也不需要扭矩。
接下来,研究者利用单颗粒冷冻电镜直接可视化肌球蛋白力诱导的F-actin超螺旋结构。重点关注能产生最多超螺旋结构的双马达状态,并在有无ATP条件下收集数据集。采用先前开发的基于神经网络的方法,分析F-actin弯曲[10],以估算肌动蛋白丝片段的曲率。聚焦于连续分布尖锐正负曲率的区域,经过广泛分类后,一个包含13,146个片段的子集得到了一个覆盖25个肌动蛋白亚基的9.5 Å分辨率的不对称重构体(图三a)。多次拼接该重构体所得体积在形态上类似于在断层图中观察到的超螺旋结构(图二a和b,图三a)。将肌动蛋白亚基作为刚体对接到三维重构图中,并通过数值拟合分析它们沿变形肌动蛋白丝轴线的定位情况(图三b)。在超螺旋F-actin重构体中,观察到广泛的结构重塑。螺旋扭转表现出与弯曲F-actin相似的波形模式,其中一条链过度扭转而另一条扭转不足,同时保持典型F-actin扭转作为其瞬时平均值(图三b)。超螺旋F-actin还具有明显的、广泛的螺旋上升,两条链表现出交替的过度延伸和不足延伸,再次以波状模式围绕与经典F-actin匹配的瞬时平均值波动(图三b)。检查单个肌动蛋白亚基的结构变形,发现超螺旋F-actin表现出显著的亚基变形,其特征是亚结构域1和4向内压缩(图三c)。以上数据表明,由肌球蛋白力诱导的超螺旋F-actin在结构上存在广泛不对称重塑,其亚基变形特征与弯曲F-actin不同。
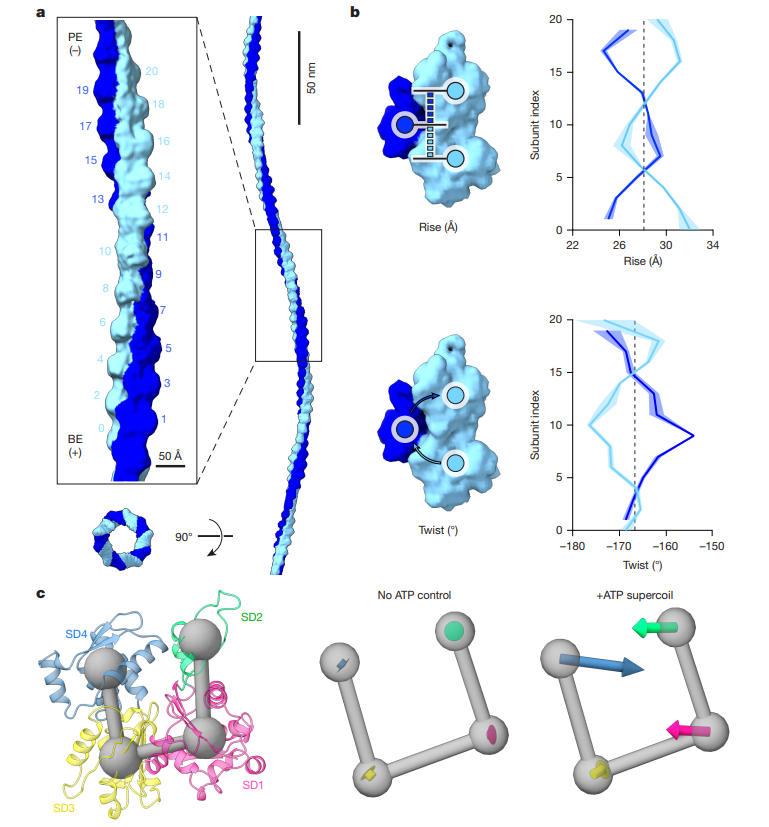
图三 超螺旋F-actin具有独特的结构重塑特征及亚基变形现象[8]
由于肌球蛋白力通过力敏感型肌动蛋白结合蛋白(ABP)调控F-actin的相互作用[11],研究者推测这些蛋白可能通过与超螺旋F-actin的特异性结合接触来识别其构象。为验证这一假说,聚焦于αE-连环蛋白的肌动蛋白结合结构域(ABD),该结构域在肌球蛋白力存在下表现出增强的F-actin结合能力。制备了含有1 µM α-连环蛋白和0.6 µM F-actin的双蛋白马达冷冻电镜样品,该条件为α-连环蛋白的亚饱和状态,可观察到力敏感性结合。经过多轮分类后,获得了分辨率为10.4 Å的共识性重构体。该图谱呈现出不对称修饰的特征,α-连环蛋白优先沿一条链结合,然后在交叉处切换到另一条链,此时两条链沿肌动蛋白丝交换侧面。为探究F-actin构象重塑与力依赖性α-连环蛋白结合之间的联系,进行三维视觉分析(3DVA)。对第一个变异性成分的检查揭示了α-连环蛋白结合与F-actin重排之间的相关性(图四a)。为了定量分析α-连环蛋白结合,将ABD和F-actin界面的高分辨率结构,由两个肌动蛋白亚基和一个ABD组成,以刚体对接的方式置于三维变异性分析轨迹每一帧中的每个结合位置。然后,测量由ABD坐标计算的面罩内图谱的积分强度,作为α-连环蛋白占据率的替代指标(图四a)。绘制每帧中肌动蛋白丝曲率与平均α-连环蛋白强度的关系图显示,轨迹中存在两个高曲率区域,其中只有一个区域同时显示高平均α-连环蛋白强度(图四b)。检查这两个三维变异性分析轨迹区域的螺旋参数显示,尽管低α-连环蛋白强度帧与未结合的超螺旋F-actin相似,但高α-连环蛋白强度帧呈现出不同的模式,其特征是更大的上升偏差且沿每条链持续延伸而无振荡,同时伴随着扭转偏差的抑制(图四c)。图四 α-连环蛋白能够检测并反向调节F-actin中由力刺激引发的结构变化[8]
为了研究F-actin重塑与α-连环蛋白结合的关联性,选择对高α-连环蛋白强度帧有贡献的颗粒。优化后得到了分辨率为12.3 Å的重构体,显示出相似的α-连环蛋白结合模式和螺旋参数。尽管图谱分辨率较低,但纵向相邻ABD之间的密度清晰可见(图四d)。对接分析将其归为α-连环蛋白C端延伸的有序部分(残基865-871),该区域此前被证明介导ABD间接触,且是力激活的肌动蛋白结合所必需的。检查了α-连环蛋白强度与每个亚基索引处瞬时上升值之间的关系,发现α-连环蛋白优先结合于具有延伸上升的位置(图四e),表明在机械力作用下,α-连环蛋白并非随机或均匀地结合到F-actin上,而是倾向于结合那些亚基间距被拉长的特定位置。
最后,研究者评估α-连环蛋白的优先结合是否与肌动蛋白亚基重塑相关。进行MDFF并检查肌动蛋白亚结构域的重排情况,发现所有肌动蛋白亚基均表现出亚结构域2的明显重新定位,这是一个灵活的片段,介导了亚基间的接触,且与α-连环蛋白的强度无关(图四f),表明亚化学计量比的α-连环蛋白与机械激发的F-actin结合,也会在未结合的位置调节肌动蛋白的构象,这与亚结构域2在F-actin结构可塑性中的既定作用一致[12]。然而,高占据率位置在α-连环蛋白ABD结合接触附近表现出特征性的肌动蛋白重排,其中亚结构域2被拉离肌动蛋白丝核心,这种构象既不同于经典F-actin,也不同于未结合的超螺旋F-actin(图四f)。这种亚结构域2的重排与亚结构域1和4的压缩减少相耦合,可能有助于缓解空间位阻应力。以上数据表明,在肌球蛋白力存在下,α-连环蛋白以非对称方式结合F-actin,优先占据具有延伸上升的位置,同时抑制扭转偏差。α-连环蛋白ABD间的协同接触,以及许可肌动蛋白亚结构域2重排的结合接触,可能有助于稳定这些晶格转变,从而缓解力诱导的亚基空间位阻应力。
综上所述,该研究综合运用冷冻电镜、冷冻电子断层扫描和分子动力学模拟,系统阐明了肌球蛋白力重塑肌动蛋白丝螺旋晶格的分子机制。该研究发现,由肌球蛋白产生的轴向压缩力可使肌动蛋白形成超螺旋构象,并暴露出特定的“构象密码”,进而被力敏感型蛋白如α-连环蛋白所识别,实现机械力到化学信号的转化。该研究将细胞力学感知的焦点从单个蛋白分子延伸到了整个肌动蛋白丝网络的构象层面,为连接细胞骨架力学、细胞连接与力敏感型蛋白识别提供了直接的分子基础,也为理解胚胎发育、组织稳态中力学信号传导以及癌症等疾病中机械力失衡提供了新的分子视角。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:甜点
新媒体运营:茄子
参考文献
1. Charras G, Yap AS: Tensile Forces and Mechanotransduction at Cell-Cell Junctions. Curr Biol 2018, 28(8):R445-r457.
2. Panciera T, Azzolin L, Cordenonsi M, Piccolo S: Mechanobiology of YAP and TAZ in physiology and disease. Nat Rev Mol Cell Biol 2017, 18(12):758-770.
3.Shyer AE, Rodrigues AR, Schroeder GG, Kassianidou E, Kumar S, Harland RM: Emergent cellular self-organization and mechanosensation initiate follicle pattern in the avian skin. Science 2017, 357(6353):811-815.
4.Sun X, Alushin GM: Cellular force-sensing through actin filaments. Febs j 2023, 290(10):2576-2589.
5.Jégou A, Romet-Lemonne G: Mechanically tuning actin filaments to modulate the action of actin-binding proteins. Curr Opin Cell Biol 2021, 68:72-80.
6.Kozuka J, Yokota H, Arai Y, Ishii Y, Yanagida T: Dynamic polymorphism of single actin molecules in the actin filament. Nat Chem Biol 2006, 2(2):83-86.
7.Drummond DR, Peckham M, Sparrow JC, White DC: Alteration in crossbridge kinetics caused by mutations in actin. Nature 1990, 348(6300):440-442.
8.Carl AG, Reynolds MJ, Sun X, Gurel PS, Phua DYZ, Hamilton K, Mei L, Watters JW, Takagi Y, Noble AJ et al: Myosin forces remodel F-actin for mechanosensitive protein recognition. Nature 2026, 654(8117):240-249.
9.Spudich JA: The myosin swinging cross-bridge model. Nature reviews Molecular cell biology 2001, 2(5):387-392.
10.Reynolds MJ, Hachicho C, Carl AG, Gong R, Alushin GM: Bending forces and nucleotide state jointly regulate F-actin structure. Nature 2022, 611(7935):380-386.
11.Smith MA, Blankman E, Gardel ML, Luettjohann L, Waterman CM, Beckerle MC: A zyxin-mediated mechanism for actin stress fiber maintenance and repair. Developmental cell 2010, 19(3):365-376.
12.Galkin VE, Orlova A, Schröder GF, Egelman EH: Structural polymorphism in F-actin. Nature structural & molecular biology 2010, 17(11):1318-1323.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!