技术分享:透明质酸基质协同组织力学调控小鼠断指再生
复杂组织的再生是许多低等脊椎动物的特征,但在大多数哺乳动物中多已丧失这种再生能力,转变成快速愈合伤口和形成纤维性瘢痕的能力。成人中这一“再生窗口”几乎完全关闭,仅有少数组织保留下来了能够进行完整多组织再生、且恢复原有结构的能力。指尖末端是其中一种,而更靠近躯干部位的指节切除则会产生瘢痕。小鼠指节切除模型可用于研究哺乳动物的再生与纤维化[1]。截断指节第三指骨(P3)的尖端后,啮齿动物和人类均可实现完整的多组织再生修复过程。这一过程的核心是芽基,一种含有异质性祖细胞的瞬时结构,负责重建缺失的组织[2, 3]。而更近端的截肢如截断第二指骨(P2)则无法实现再生,表现为极少的再生长,并在受损的骨残端上覆盖瘢痕组织[1]。长期以来,针对这一现象的研究主要聚焦于分子信号通路和细胞起源方面,而外在因素尤其是周围微环境的物理和机械信号所起的作用仍鲜为人知。
正常的伤口愈合依赖于细胞外基质(ECM)的合成作为临时支架,但是ECM的过度积累如纤维化会破坏组织结构,并导致重大疾病负担[4]。ECM在各种生物学情境中提供关键的化学和力学信号,包括组织形态发生、稳态维持和衰老过程[5]。ECM还能够影响再生和纤维化[5]。对胎儿无瘢痕皮肤损伤的研究提示,ECM的成分透明质酸(HA)可能发挥保护作用,这是一种由N-乙酰葡糖胺和葡糖醛酸组成的线性、非硫酸化聚合物。事实上,胎儿伤口愈合时,在维持高水平透明质酸的同时,胶原沉积极少;而成人伤口则表现为广泛的胶原沉积,伴随着透明质酸的快速降解[6, 7]。然而,透明质酸与ECM力学如何共同调控成年哺乳动物中再生与纤维化这两种不同结果,目前仍知之甚少。
2026年4月,Science期刊报道了一项研究,发现细胞外基质(ECM)和组织力学协同调控小鼠指端切除后的伤口愈合反应。非再生区域的组织硬度更高,含有致密且排列有序的胶原纤维,而再生区域的组织则较为柔软,富含透明质酸(HA)。去除透明质酸会抑制再生并促进纤维化,表明透明质酸与胶原蛋白的平衡塑造了组织力学特性和修复信号。在非再生断指模型中,利用蛋白聚糖连接蛋白1(HAPLN1)将透明质酸与蛋白聚糖如聚集蛋白聚糖(ACAN)连接起来,可调节ECM力学特性、减少瘢痕形成并增强骨修复。该研究证明了ECM的组成和力学特性对细胞行为的影响,靶向ECM的策略有望解锁哺乳动物的再生能力,为转化医学提供了新的思路[8]。
首先,研究者探究小鼠指端再生与非再生过程中的微环境差异。利用二次谐波发生显微成像技术,对小鼠指端去除后的胶原基质进行研究。结果显示,在第二指骨(P2)截肢后第14天(14 DPA),非再生伤口中含有致密的、类似纤维化的胶原,而在去除第三指骨尖端(P3)的再生伤口芽基中这类胶原基本不存在(图一A)。通过透射电子显微镜确认了胶原的结构特征,以及非再生组织中存在更为有序的纤维束(图一B)。为探究导致胶原丰度差异的原因,对非再生伤口进行单细胞转录组分析,并与先前发表的芽基和非再生数据集进行整合[9](图一C)。检测到七个不同细胞集群,为了鉴定出主要负责ECM生成的细胞类型,根据核心基质体基因[10]的表达情况,为每个细胞计算了一个ECM评分(图一D)。结果显示,高表达Pdgfra的细胞集群表现出最高的ECM活性,远超其他所有集群(图一D)。基因集富集分析表明,该集群上调了与ECM相关通路,包括“胶原纤维组织”和“细胞外基质组织”。因此,研究者推断成纤维细胞构成了Pdgfra细胞集群的主要成分,也是建立细胞外微环境的主要细胞类型。
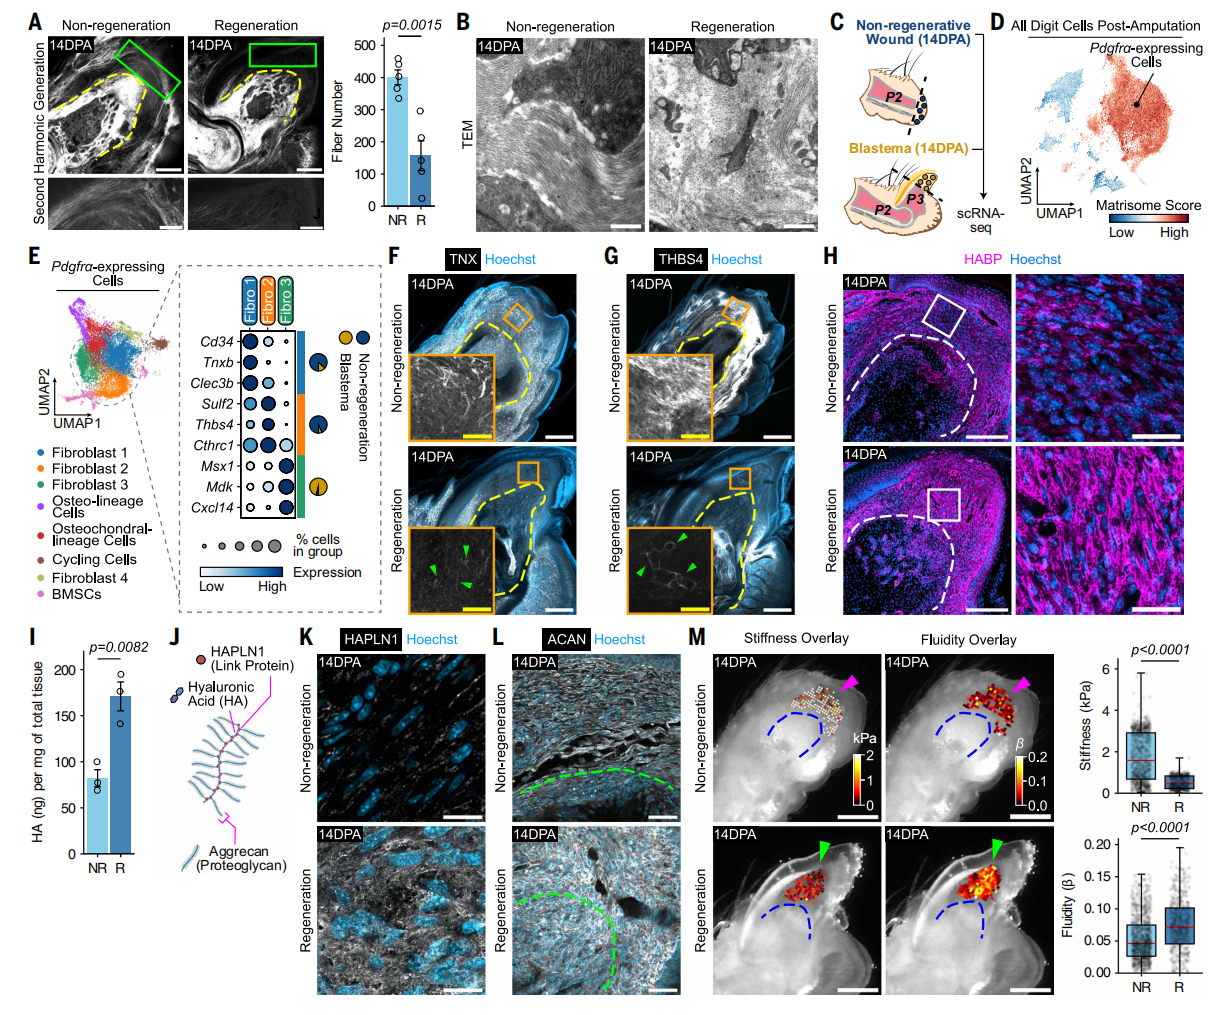
图一 微环境决定了指端切除后的再生或纤维化[8]
成纤维细胞具有异质性,对Pdgfra细胞集群进行亚群分析后,鉴定出八种转录特征,其中成纤维细胞1和2亚型在非再生组织中尤为富集(图一E),推测这两种亚型的主导地位及其活性是导致纤维化反应的主要原因。所有表达Pdgfra的细胞集群均能以相似程度表达纤维状胶原。然而,在非再生伤口中鉴定出升高的胶原重塑基因,例如由PDGFRα+CD34+CD31- 成纤维细胞1表达的腱生蛋白X(TNX,图一E和F),以及由SULF2+ 成纤维细胞2表达的血小板反应蛋白-4(THBS4,图一E和G)。值得注意的是,成纤维细胞3是芽基的主要亚型,高表达与肢体再生相关的标志物如Msx1和Mdk,但并未差异表达主要的胶原重塑基因(图一E)。以上数据表明,成纤维细胞1和2细胞及其分别上调的Tnxb和Thbs4是非再生所特有的,提示胶原基质的维持和/或重塑驱动了纤维化反应。
鉴于纤维化是再生的对立面,研究者推测芽基富集了合成再生特异性ECM的细胞亚型。细胞亚型相关性分析和基因表达分析表明,成纤维细胞1和2与骨谱系细胞的差异最大,而骨谱系细胞在芽基中的丰度约为前者的三倍。骨谱系细胞还具有最高的胶原和蛋白聚糖的表达,其所处的微环境中,非胶原性基质组分尤其是透明质酸在芽基中显著存在(图一H)。芽基中的总透明质酸含量相比非再生组织更高(图一I)。由于透明质酸本身是一条很长、无分支、带负电的线性多糖链,在基质中透明质酸可作为核心骨架,通过连接蛋白与蛋白聚糖结合,形成“刷状聚集体”结构(图一J)。研究者检测了蛋白聚糖连接蛋白1(HAPLN1)和聚集蛋白聚糖(ACAN)的分布,发现两者在芽基中也更为丰富(图一K和L)。鉴于ECM中的胶原蛋白和透明质酸的组织力学特性不同,研究者利用原子力显微镜和力钳力映射技术研究了截肢指端的物理特性。发现非再生伤口与芽基之间存在力学差异,前者的硬度更大且流动性更低(图一M)。提示在P3指尖去除后、缺乏主要胶原基质的情况下,芽基中的骨谱系细胞合成了包含透明质酸、HAPLN1和ACAN组成的丰富基质,为再生过程形成了一个独特的ECM微环境。细胞固有的特性与损伤诱导的ECM重塑共同塑造了不同的再生与非再生微环境。
于是,研究者探究指尖再生是否依赖于透明质酸。去除P3尖端后的第8到12天,指端连续注射透明质酸酶以酶解透明质酸,14 DPA时,再生指端长度显著缩短,面积也变小(图二A)。经透明质酸酶处理后,RUNX2+骨谱系细胞及其周围的透明质酸也减少(图二B),证实了骨谱系细胞与透明质酸之间的关系。为实现持续性耗竭透明质酸,将4-甲基伞形酮(4-MU)掺入小鼠饮食中,以降低合成透明质酸的底物UDP-葡萄糖醛酸的水平(图二C)。提前喂食4-MU三周时间,再进行P3指尖去除,14 DPA时再生长度和面积均缩小。到28 DPA时,对照组指端再生已基本完成,但4-MU处理组指端再生仍明显较小(图二D)。检查芽基状态,发现4-MU处理组的指端整体下调了芽基标志物芳基硫酸酯酶I(ARSI)的表达(图二E)。芽基中含有大量Ki67+增殖细胞,尤其是成骨细胞,而4-MU处理则显著减少了这些细胞的数量(图二F)。通过显微计算机断层扫描观察到在14 DPA,对照组再生指端表现出组织溶解即远端骨碎片排出导致的骨缩短,以及新骨形成。而4-MU处理组延迟了组织溶解诱导的骨缩短,且未检测到新骨形成。到28 DPA时,4-MU处理组指端的骨体积、表面积和长度仍显著减小(图二G)。再生指端含有丰富的SP7+成骨细胞,而4-MU处理组的成骨细胞数量显著减少,且沉积了纤维化胶原(图二H),表现为偏向非再生性的ECM。以上数据表明,透明质酸的耗竭干扰了P3去除的再生能力,可能因芽基形成和分化失败所致,表明透明质酸在指尖再生中具有重要作用。
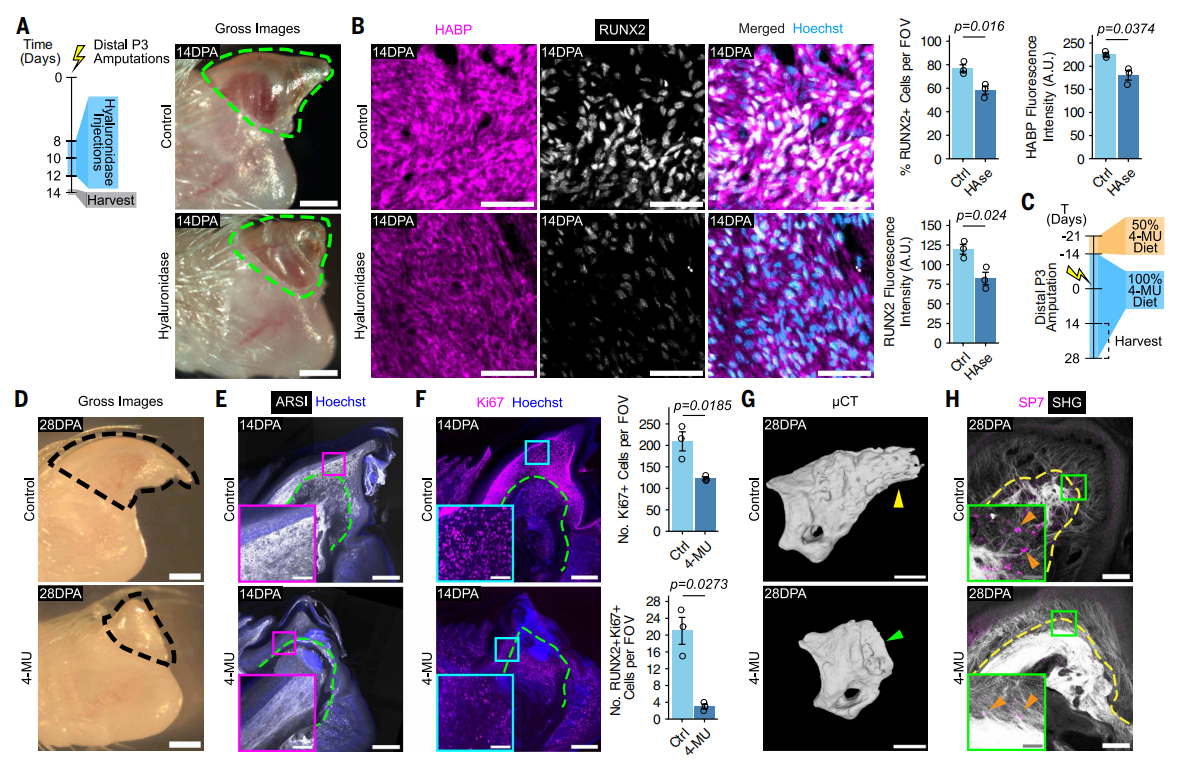
图二 透明质酸是P3指尖去除后成功再生所必需的[8]
接下来,研究者探究透明质酸能否抑制纤维化胶原。比较减少透明质酸后的胶原基质情况,发现透明质酸酶处理增加了胶原含量,并促进了纤维化结构特征的形成(图三A)。喂食4-MU耗竭透明质酸,14 DPA也观察到了类似的特征(图三B)。测量硬度和流动性,发现与对照组相比,4-MU处理组指端硬度更高且流动性更低(图三C)。为探究透明质酸耗竭引起的组织力学变化如何影响细胞行为,对P3再生指端进行单细胞转录组分析,发现4-MU处理组的骨谱系细胞比例减少(图三D)。比较Pdgfra表达细胞集群,发现4-MU处理组的骨谱系细胞相关基因Ibsp和Alpl的表达下调,同时Sox6及其靶基因Acan的表达也下调,而与ECM硬度增加相关的S100a4和Tnc的表达上调(图三E)。探究与骨形态发生蛋白(BMP)通路之间的关系,4-MU处理组未观察到芽基中Wnt激活的变化;而BMP信号的主要效应因子pSMAD1/5/8,在对照组指端中随着再生的推进而升高,4-MU处理组则持续抑制了pSMAD1/5/8的水平(图三F)。以上数据表明,骨谱系细胞不仅有助于建立再生过程的ECM环境,而且对透明质酸和组织力学的变化高度敏感,透明质酸与胶原的平衡决定了指端修复方向。
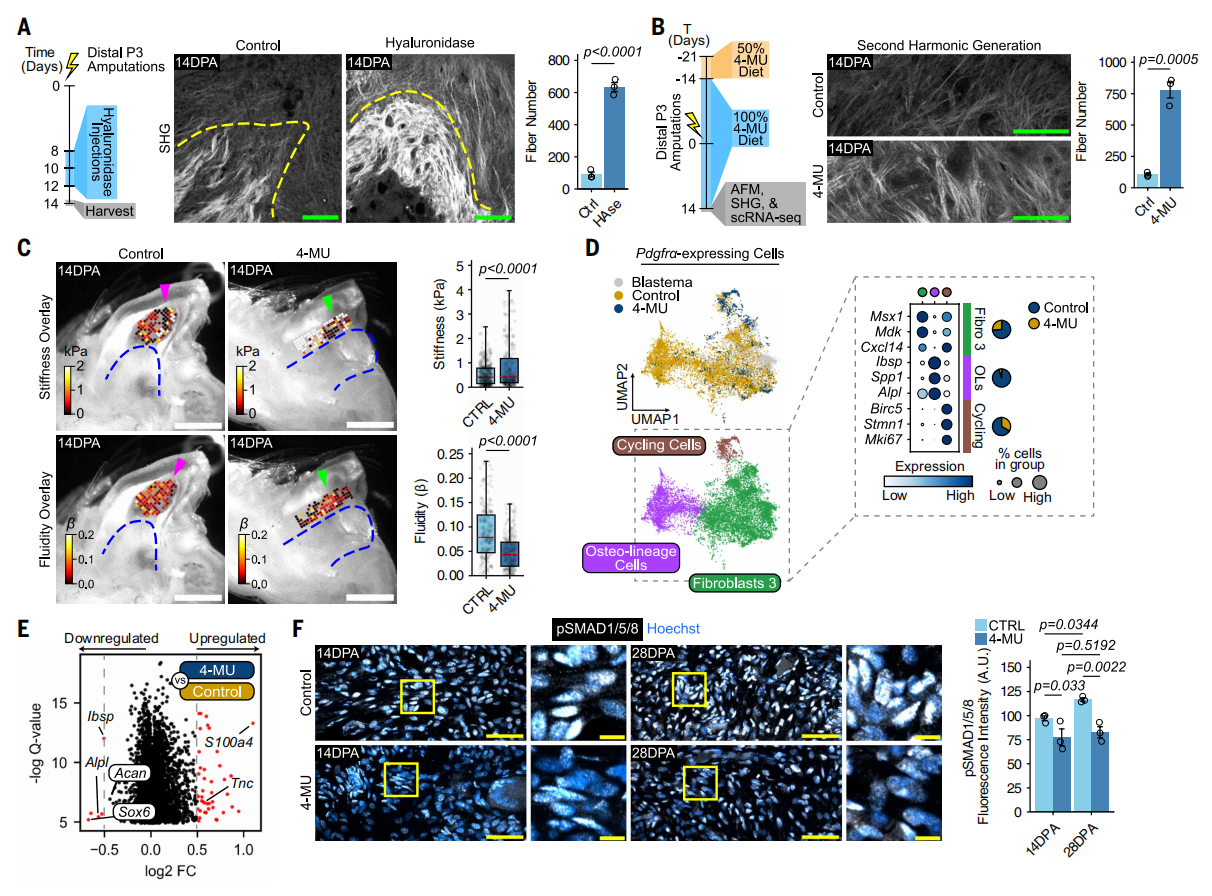
图三 胶原与透明质酸的平衡决定了纤维化与再生之间的命运抉择[8]
为解析机械信号与可溶性信号之间的相互作用,研究者制备了硬质与软质StemBond水凝胶[11],分别模拟非再生伤口与芽基的力学微环境,以及添加不同芽基相关生长因子进行刺激(图四A)。相比硬质基底,背部皮肤成纤维细胞培养在软质基底上经BMP-7处理后,其细胞核内pSMAD1/5/8信号显著增强(图四A);pSMADs早期下游效应因子Id1也在软质基底的上调水平最高(图四B)。从P2和P3指骨分离出新鲜细胞,经同样处理也能观察到类似的趋势,这些细胞在软质条件下BMP-7刺激后,Id1表达上调最为显著(图四C),表明基底硬度可调节细胞对BMP配体的反应性。
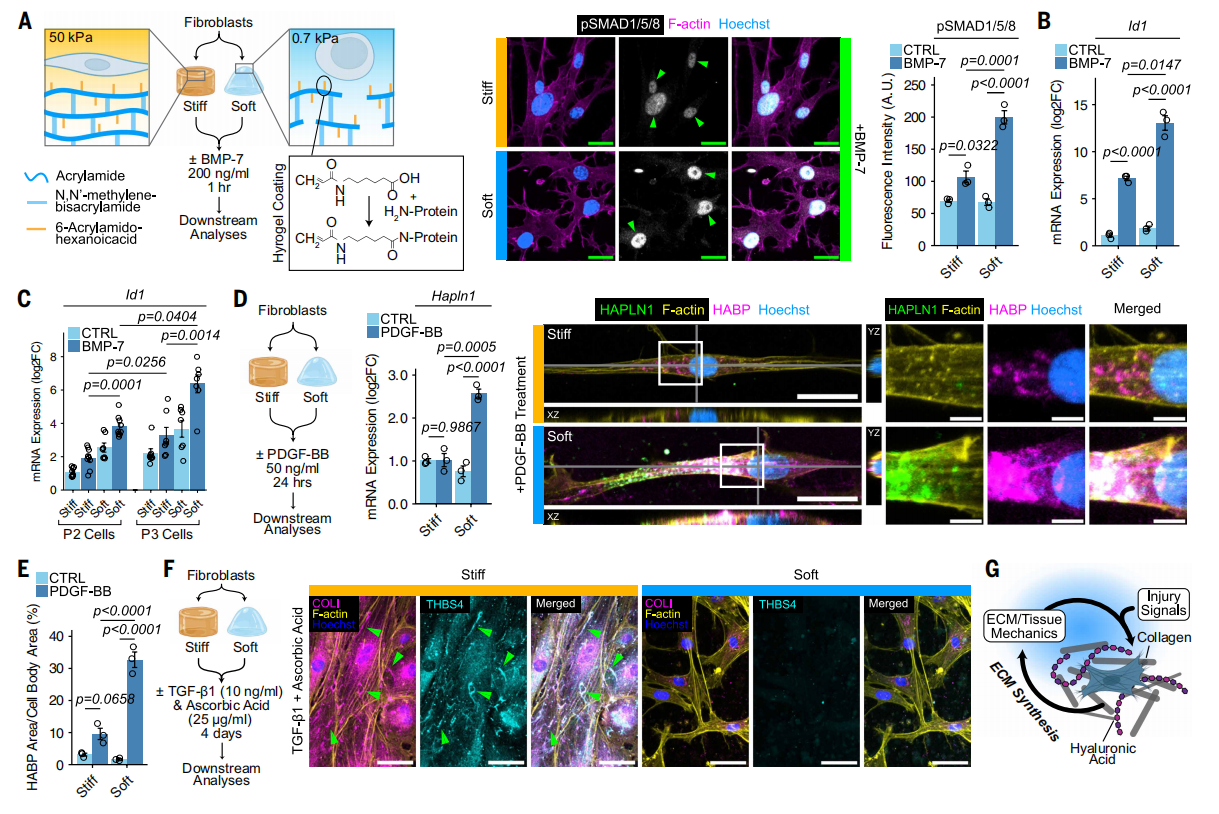
图四 基底硬度调控ECM合成与损伤信号应答之间的反馈回路[8]
接着,使用血小板源性生长因子-BB(PDGF-BB),一种具有强大透明质酸合成活性的芽基损伤信号。发现培养在软质基底并用PDGF-BB处理的成纤维细胞,其Hapln1表达显著上调(图四D)。透明质酸是在细胞膜上边合成、边穿膜输出到细胞外,可停留在细胞表面,形成细胞周围基质,也可释放组装成更广泛的ECM。而连接蛋白HAPLN1赋予了透明质酸基质的结构完整性。于是,研究者探究细胞膜上透明质酸的组装情况。PDGF-BB处理后,与硬质基底相比,软质基底上的成纤维细胞在细胞表面产生了更多的透明质酸与HAPLN1聚集体(图四D和E),表明软质力学信号可增强促再生ECM的合成。
为探究硬质环境是否会增强非再生ECM,研究者使用转化生长因子-β1(TGF-β1)和抗坏血酸来诱导胶原合成(图四F)。在硬质基底的成纤维细胞产生了纤维状胶原基质,大部分与THBS4共定位(图四F),均为非再生ECM的特征。相反,在软质条件下,无论是否添加TGF-β1和抗坏血酸,均未检测到胶原I-THBS4网络的形成(图四F)。以上数据表明,透明质酸赋予的软质基底可能启动正反馈机制增强透明质酸基质的产生,而硬质基底则促进诱导胶原纤维的形成(图四G)。
最后,探究增加透明质酸基质能否促进再生。基于上述数据HAPLN1与透明质酸的强相关性,研究者测试过表达HAPLN1能否促进透明质酸基质的形成。在背部皮肤成纤维细胞中过表达Hapln1(Hapln1OE),培养在硬质水凝胶上,并添加高分子量的透明质酸(图五A)。尽管补充了透明质酸,但对照组细胞表面的透明质酸基质分布仍然稀疏且有限;相比之下,Hapln1OE成纤维细胞合成了大量的HAPLN1,并伴随着细胞外周的透明质酸基质显著增加(图五A)。与此同时,添加抗坏血酸诱导胶原纤维形成,发现与对照组相比,Hapln1OE成纤维细胞积累了丰富的透明质酸基质,同时胶原纤维数量更少、长度更短(图五B),表明HAPLN1增加了透明质酸基质沉积并抑制了胶原纤维形成,提示HAPLN1具有非再生环境下促进再生性ECM的潜力。
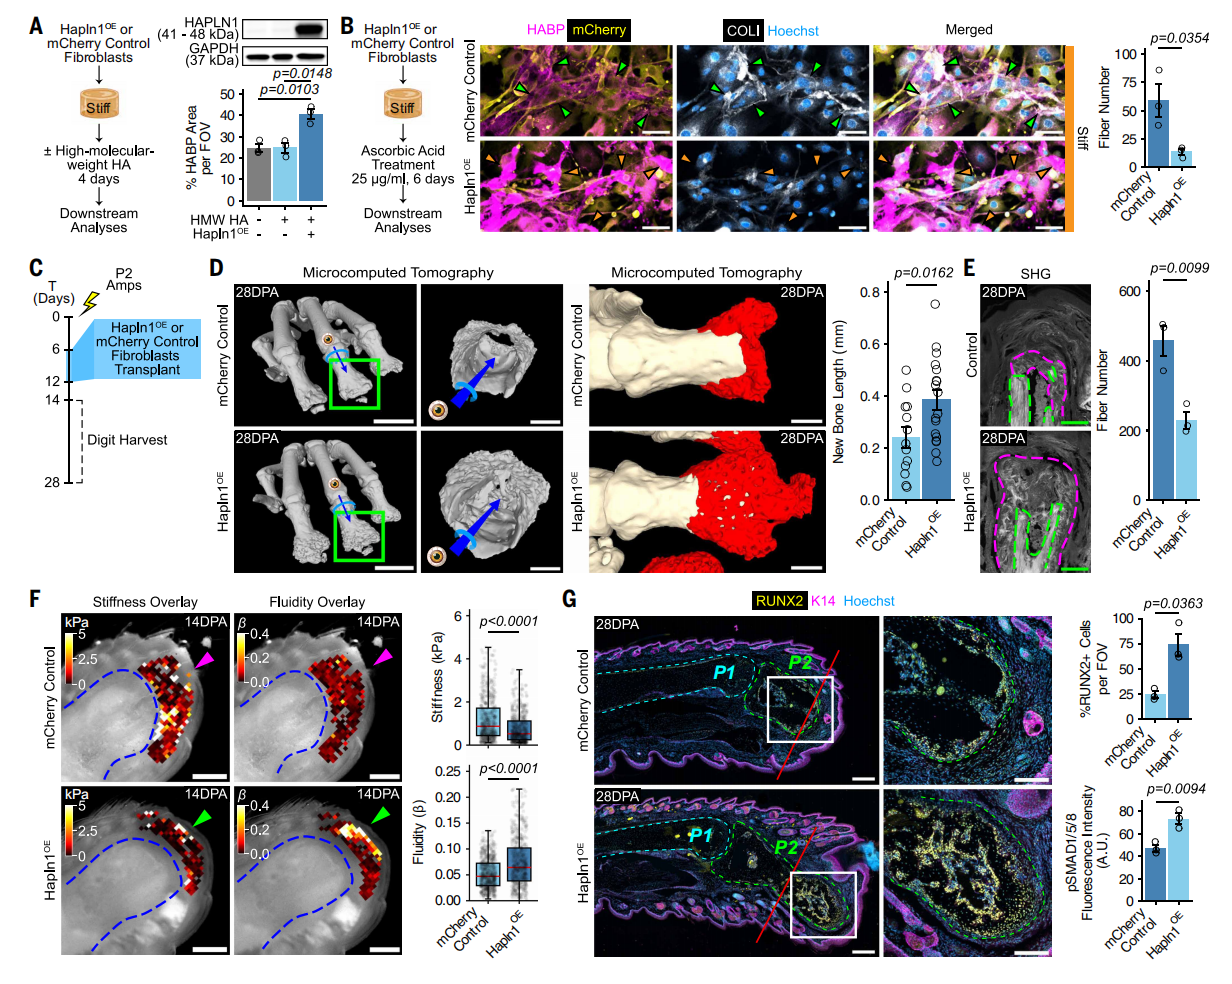
图五 透明质酸基质沉积可促进非再生截肢后的指端修复[8]
进一步进行小鼠体内测试,在成年免疫缺陷小鼠上进行P2非再生指端去除,6天后开始移植对照或Hapln1OE成纤维细胞到指端(图五C)。通过显微计算机断层扫描,发现注射Hapln1OE成纤维细胞的指端骨修复增强,表现为更长的骨延长和生长,再生的骨组织超出了最初的截肢平面,而对照组则几乎没有新组织形成(图五D)。Hapln1OE成纤维细胞移植减少了纤维化胶原基质的存在(图五E),并促进了透明质酸和HAPLN1的积累。原子力显微镜证实与对照组相比,Hapln1OE组指端截肢部位的硬度降低、流动性增加(图五F)。分析再生组织中的细胞类群,检测了分化程度更高的RUNX2+骨谱系细胞。对照组中,仅在预先存在的皮质骨附近观察到RUNX2+骨谱系细胞(图五G)。然而,Hapln1OE成纤维细胞移植组28 DPA时显著增加了RUNX2+骨谱系细胞的数量,并向远端分布,这与骨再生相一致(图五G)。此外,Hapln1OE组的pSMAD1/5/8的水平升高(图五G),表明对BMP信号的反应性增强。以上数据表明,HAPLN1可能通过增强透明质酸基质沉积来软化组织微环境,进而在非再生指端去除后,触发了修复性再生。
综上所述,该研究探讨了组织的物理环境与再生或纤维化结局之间的关系。细胞外基质(ECM)及其产生的组织力学特性是区分小鼠指端去除后非再生与再生反应的关键属性。ECM中胶原蛋白与透明质酸的平衡决定了纤维化与再生之间的命运抉择。再生组织芽基中含有大量的透明质酸,这是再生所必需的。耗竭透明质酸基质会触发P3截肢指尖向纤维化ECM的组织力学特性转变。反之,过表达连接蛋白HAPLN1可增强透明质酸基质沉积,实现P2非再生截肢后的部分指端修复。该研究证明了ECM成分及其组织力学特性能够调控纤维化与再生,为再生医学开辟了全新的思路和靶向策略。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:多一百
新媒体运营:suway
参考文献
1. Borgens RB: Mice regrow the tips of their foretoes. Science 1982, 217(4561):747-750.
2. Johnson GL, Masias EJ, Lehoczky JA: Cellular Heterogeneity and Lineage Restriction during Mouse Digit Tip Regeneration at Single-Cell Resolution. Developmental cell 2020, 52(4):525-540.e525.
3. Rinkevich Y, Lindau P, Ueno H, Longaker MT, Weissman IL: Germ-layer and lineage-restricted stem/progenitors regenerate the mouse digit tip. Nature 2011, 476(7361):409-413.
4. Mutsaers HAM, Merrild C, Nørregaard R, Plana-Ripoll O: The impact of fibrotic diseases on global mortality from 1990 to 2019. Journal of translational medicine 2023, 21(1):818.
5. Sakai T, Larsen M, Yamada KM: Fibronectin requirement in branching morphogenesis. Nature 2003, 423(6942):876-881.
6. Krummel TM, Nelson JM, Diegelmann RF, Lindblad WJ, Salzberg AM, Greenfield LJ, Cohen IK: Fetal response to injury in the rabbit. Journal of pediatric surgery 1987, 22(7):640-644.
7. Longaker MT, Chiu ES, Adzick NS, Stern M, Harrison MR, Stern R: Studies in fetal wound healing. V. A prolonged presence of hyaluronic acid characterizes fetal wound fluid. Annals of surgery 1991, 213(4):292-296.
8. Mui BWH, Wong JJY, Dumas CE, Wang JH, Bray T, Hirose K, Connolly L, Winkel A, Timmler S, Bright NA et al: Hyaluronic acid and tissue mechanics orchestrate mammalian digit tip regeneration. Science 2026, 392(6794):eady3136.
9. Storer MA, Mahmud N, Karamboulas K, Borrett MJ, Yuzwa SA, Gont A, Androschuk A, Sefton MV, Kaplan DR, Miller FD: Acquisition of a Unique Mesenchymal Precursor-like Blastema State Underlies Successful Adult Mammalian Digit Tip Regeneration. Developmental cell 2020, 52(4):509-524.e509.
10. Naba A, Clauser KR, Hoersch S, Liu H, Carr SA, Hynes RO: The matrisome: in silico definition and in vivo characterization by proteomics of normal and tumor extracellular matrices. Molecular & cellular proteomics : MCP 2012, 11(4):M111.014647.
11. Labouesse C, Tan BX, Agley CC, Hofer M, Winkel AK, Stirparo GG, Stuart HT, Verstreken CM, Mulas C, Mansfield W et al: StemBond hydrogels control the mechanical microenvironment for pluripotent stem cells. Nature communications 2021, 12(1):6132.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!