技术分享:线粒体-溶酶体接触促进溶酶体酸化和抵抗衰老
真核细胞中存在着多种膜结合细胞器,分别提供富含特定分子的特殊微环境,以支持最佳的酶活性及代谢过程。细胞内的质子浓度起着关键作用,质子化决定了蛋白质和RNA的折叠、结构、相互作用、催化反应以及代谢物的反应性[1]。例如,溶酶体作为负责降解细胞内容物以维持细胞蛋白质稳态的核心细胞器,其内腔通常维持着酸性pH,这对于各种分解代谢酶的活性至关重要[2]。领域内普遍认为,溶酶体(酵母中为液泡)主要利用保守的V-ATPase复合体,从周围中性细胞质中摄取游离质子(H+),从而维持内腔酸化低至pH 4.5[3, 4]。胞质代谢可产生游离H+以及在生理pH下解离成带电形式和H+中间产物,成为胞质H+的重要来源[5]。此外,线粒体基质内的分解代谢过程也产生H+,且必须被输出以维持线粒体的pH稳态[6]。据估算,单个酵母细胞质中游离H+的数量少于3,000[7]。细胞质代谢物和蛋白质具有多个可质子化基团,对游离H+具有强亲和力,而这些细胞质缓冲分子的丰度比游离H+水平高出5-10个数量级,显著降低了H+在细胞质中的可用性和扩散范围[8]。因此,溶酶体/液泡的V-ATPase必须与大量的细胞质缓冲分子竞争游离H+,大概率只能捕获其邻近区域新增的H+。
此外,尽管溶酶体在人体细胞内快速运输和混合的动态变化,其pH值存在显著的异质性[9]。氨(NH3)是一种内源性代谢物,这种弱碱会破坏溶酶体的酸性。当溶酶体被NH4Cl短暂中和时,位于核周区域的溶酶体重新酸化的速度显著快于外周区域溶酶体[9]。类似地,在芽殖酵母的不对称细胞分裂中,将产生一个衰老母细胞和一个重置衰老时钟的芽体子细胞。有趣的是,分裂后的母细胞和子细胞的液泡之间会产生显著的pH差异,尽管它们共享相同的中性胞质,并且子细胞中的液泡实际是从母细胞继承而来的[10]。衰老母细胞的液泡会发生年龄依赖性的酸化丧失,这一现象在后生动物中是保守的。而这些碱化液泡被年轻子细胞继承时,则会经历重新酸化[10]。然而,目前尚不清楚,在细胞质中普遍分布的质子如何导致溶酶体/液泡内pH的空间差异,以及这种不均匀酸化的根本原因是什么。
2026年6月,Molecular Cell期刊发表了一项研究,发现了一种从酵母到人类高度保守的溶酶体/液泡酸化新机制:通过线粒体-溶酶体/液泡膜接触位点,溶酶体/液泡摄取了由线粒体电子传递链泵出的质子来维持酸性环境。在衰老细胞中,线粒体-溶酶体/液泡接触的缺失会导致酸化缺陷,通过人工设计的连接子恢复接触可改善酸化。在酵母的不对称分裂中,子细胞可恢复线粒体-液泡接触,促进重新酸化。在衰老的人类细胞中维持溶酶体酸化,能够阻止诱导衰老相关分泌表型因子,并恢复自噬流。该研究拓宽了溶酶体/液泡的酸化机制及其对衰老/再生的影响,为延缓衰老和治疗溶酶体相关疾病提供了全新的思路[11]。
首先,研究者探究线粒体功能是否影响酵母细胞的液泡酸化过程。使用一种成熟的液泡酸化荧光探针Quinacrine[10],来检测液泡酸化程度。结果发现,过表达线粒体输入受体蛋白TOM70可以促进衰老酵母的液泡重新酸化(图一A-C)。TOM70蛋白能够在衰老过程中保持线粒体膜电位(MMP)。MMP是由电子传递链(ETC)复合物的质子泵所产生,这些泵将质子从线粒体基质泵到膜间隙,从而在线粒体内膜上建立起一个电化学质子梯度。由于膜间隙的质子可以向各个方向自由扩散,线粒体外膜的多孔性质可能有助于部分质子从线粒体中扩散出来,可能有助于液泡酸化。与常规2%葡萄糖培养基(YPD)中生长的细胞相比,增强MMP的生长条件如热量限制和非发酵碳源(甘油,YPG),也能增强液泡酸化(图一D和E)。反之,使用特异性抑制ETC复合物III的抗霉素A会严重损害液泡酸化(图一F和G)。MMP/H+梯度对于F1-F0 ATP酶产生ATP也至关重要。然而,使用寡霉素抑制F1-F0 ATP酶并不影响液泡酸化(图一F和G),表明线粒体MMP/H+梯度是液泡酸化的一个重要H+来源,以及在含葡萄糖培养基中通过细胞质糖酵解产生的ATP足以驱动V-ATPase[12]。
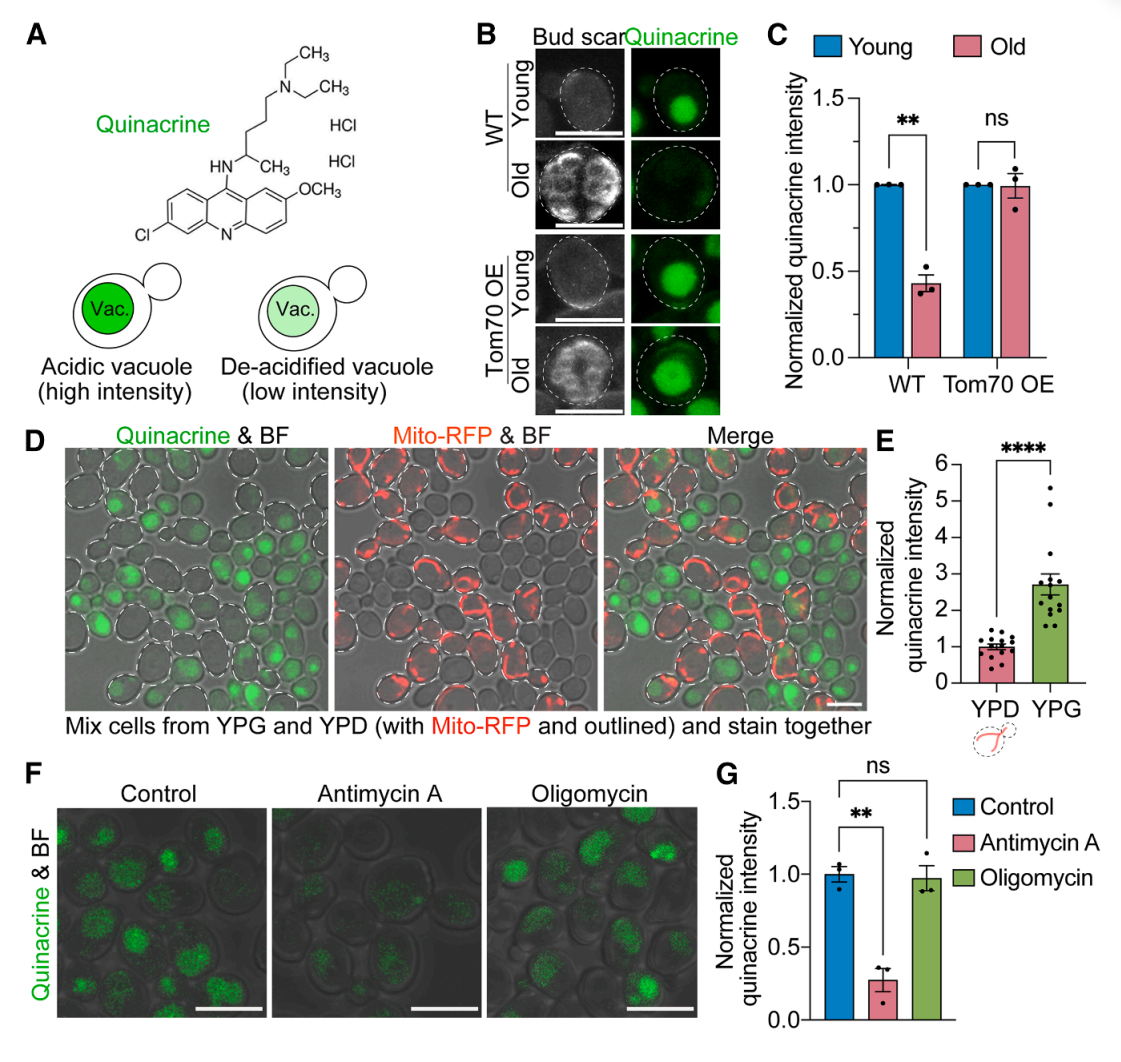
图一 改变线粒体功能会影响酵母液泡酸化[11]
鉴于从线粒体外膜释放的大部分H+很可能在到达V-ATPase之前就被细胞质缓冲分子所吸收,研究者推测线粒体与液泡之间的膜接触位点(Mito-Vac接触)可能有助于质子直接从线粒体转移到液泡促进酸化。在酵母中,液泡膜锚定的Rab GTP酶Ypt7及其效应因子Vam6,可与线粒体外膜TOM复合物的Tom40形成一个蛋白桥Ypt7-Vam6-Tom40,称为vCLAMP(图二A)。这些细胞器接触在哺乳动物细胞中是保守的,其中RAB7(Ypt7的同源物)调节线粒体-溶酶体接触的形成[13]。vCLAMP蛋白在细胞内具有多重功能,为排除间接效应,研究者采用替代方法,设计了工程化Mito-Vac连接子。将mCherry与线粒体外膜蛋白Fis1的跨膜结构域融合(mito-mCh),又将定位于液泡膜的Vps10与mCherry纳米抗体相融合,从而拉进线粒体与液泡的距离(图二A)。结果证实表达Mito-Vac连接子能增加线粒体-液泡接触,与过表达Vam6和Ypt7作用相似(图二B和C),均能增强液泡酸化(图二D-F)。
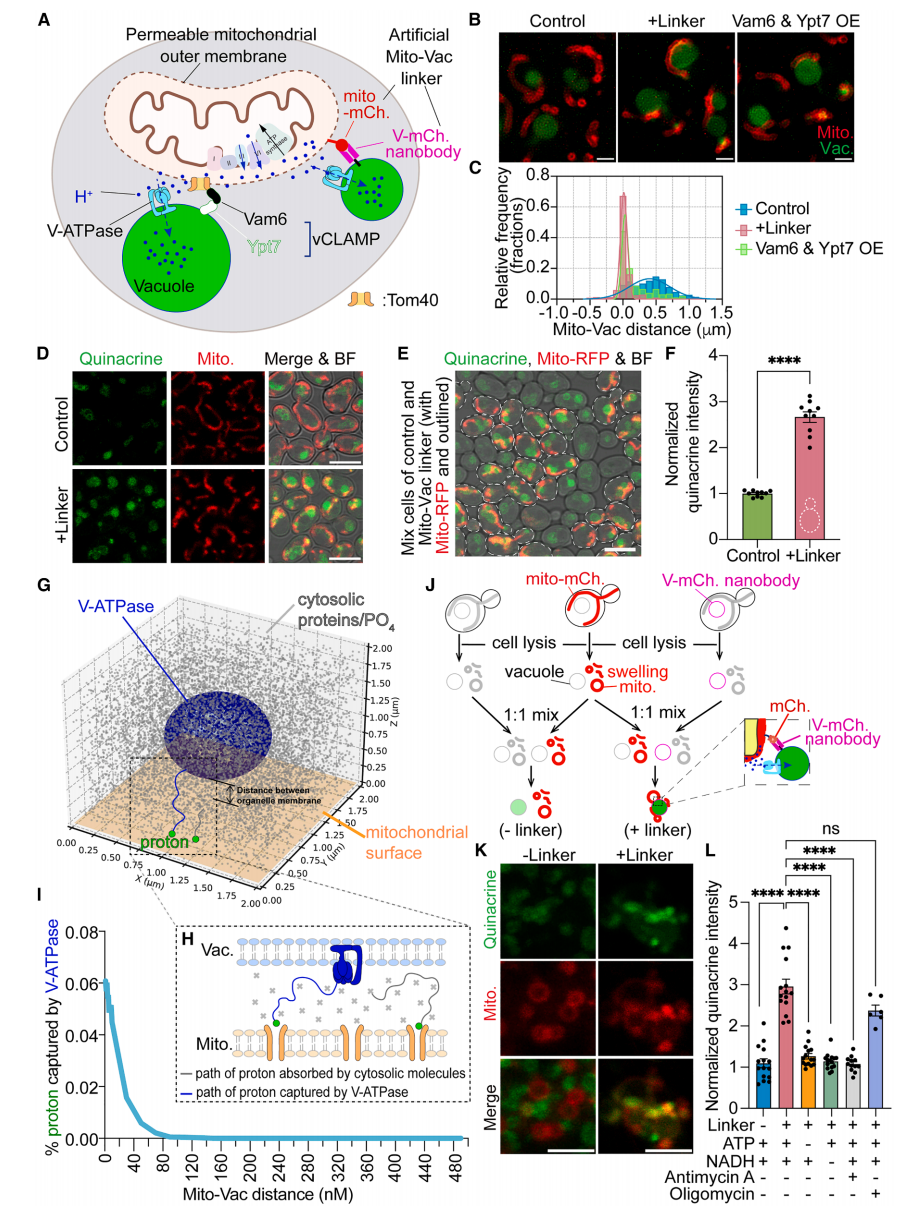
图二 线粒体-液泡接触对液泡酸化至关重要[11]
为深入了解膜接触位点在质子转移中的作用机制,研究者进行计算机分子模拟质子扩散和捕获,并使用实验测量的生理参数值进行校正(图二G)。在该模型中,质子从线粒体外膜随机释放,在细胞质环境中的蛋白质和磷酸盐分子、以及一定分布密度的液泡V-ATPase复合物之间扩散(图二H)。计算机模拟显示,只有当线粒体与液泡足够紧邻时,V-ATPase才能有效捕获这些质子,否则细胞质中大量缓冲分子会迅速中和质子(图二I),提示了细胞器接触位点提供的空间邻近性对于V-ATPase捕获线粒体质子至关重要。为排除细胞质因素并检测质子从线粒体到液泡的直接转移,研究者裂解细胞去除细胞质后,将细胞器重悬在pH 7.5的缓冲液中(图二J)。将不同菌株的mito-mCh标记线粒体和V-mCh纳米抗体标记液泡进行1:1混合,能够体外建立线粒体与液泡连接(图二K)。与未连接线粒体的液泡相比,在ATP和NADH存在下,连接线粒体的液泡能显著酸化(图二K和L)。以上结果表明,Mito-Vac接触介导了质子从线粒体快速转移至液泡,对于液泡的酸化至关重要。
接着,研究者探究这种Mito-Vac接触是否介导了酵母母细胞中的液泡酸化丧失,以及子细胞的重新酸化。使用split-GFP系统对Mito-Vac接触进行可视化,分别将GFP1-10与液泡膜蛋白Zrc1相融合,GFP11则与线粒体Tom70相融合,并由pGAL启动子驱动表达(图三A)。短暂诱导Tom70-GFP11后,当其与液泡锚定的Zrc1-GFP1-10在数纳米距离内时,即可重组形成GFP,指示了Mito-Vac接触位点。结果显示,在衰老早期Mito-Vac接触位点显著减少(图三B和C)。在年轻细胞中,Vam6-GFP主要定位于Mito-Vac接触位点上[14]。确实发现Vam6-GFP的丰度在复制性衰老早期阶段出现减少,且随着衰老,在Mito-Vac接触位点上的分布减少,表现为细胞质的弥散分布(图三D和E)。Vam6-GFP的这种年龄依赖性减少也在延时成像中观察到,与新生子细胞相比,母细胞中的Vam6-GFP水平降低(图三F)。研究者分离出复制性衰老细胞,其液泡碱化已经建立,瞬时表达Mito-Vac连接子,发现能够有效恢复液泡的酸化(图三G和H)。此外,持续低水平表达Mito-Vac连接子可维持液泡酸化,进而将酵母的复制性寿命延长约20%(图三I)。以上实验结果表明,线粒体-液泡接触对于维持细胞酸化稳态及延缓衰老具有关键保护作用。
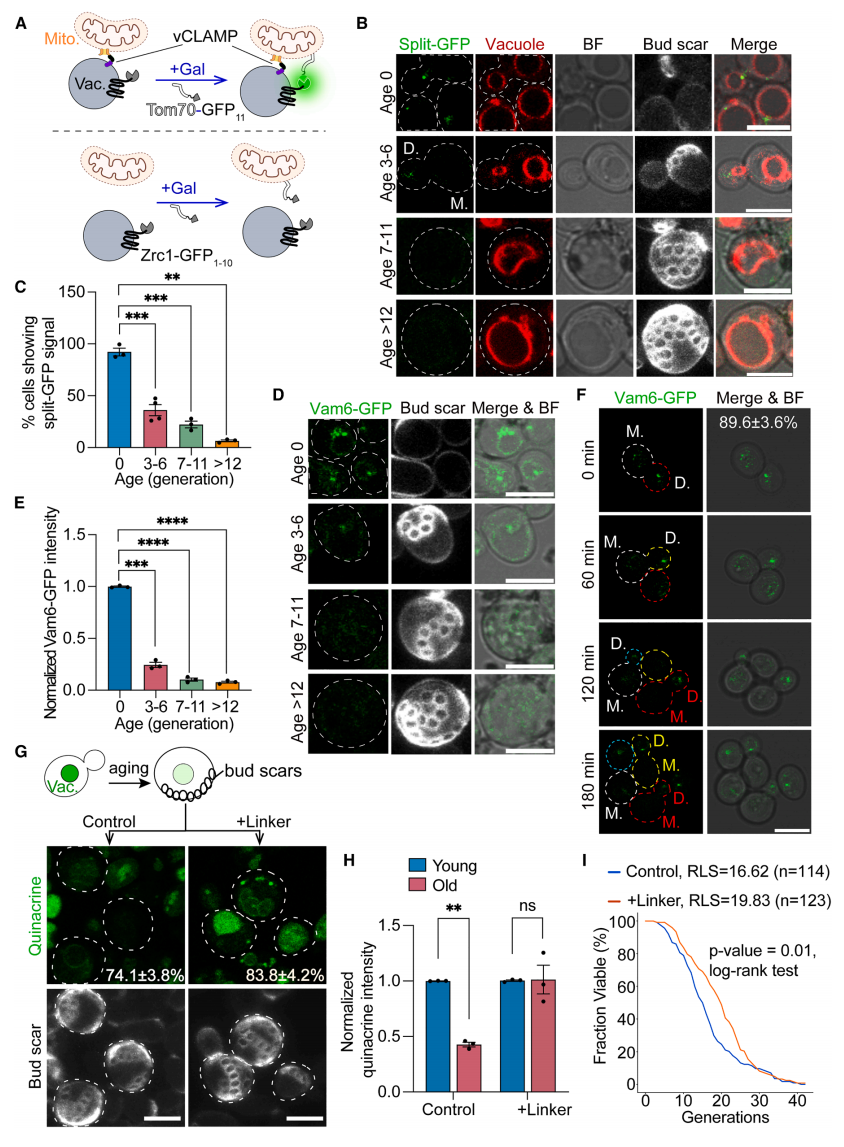
图三 线粒体-液泡接触在衰老过程中减少[11]
研究者推测线粒体-液泡接触可能也驱动了子细胞的液泡年轻化。野生型细胞的超分辨成像显示,线粒体和液泡在不对称细胞分裂时均从母细胞迁移至芽尖,并在子细胞内部形成广泛的接触(图四A和B)。这一现象可能因定位于芽尖的Bni1产生汇聚于芽尖的极性肌动蛋白束,促进了细胞器的极性运输[15](图四C)。敲除Bni1(Δbni1)不仅减少了芽体内线粒体与液泡之间的膜接触(图四A和B),还损害了子细胞中液泡的酸化。研究者进一步使用温度敏感型突变体(bni1ts)瞬时失活Bni1[16],在许可温度下培养的bni1ts表现出正常的液泡pH不对称性,但在短暂热激后几乎完全阻断子细胞中液泡的酸化,而不影响液泡的继承(图四D和E)。对既往质谱数据的分析发现Vam6与Mob2相互作用,Mob2是一种定位于子细胞皮层并在极性生长过程中富集于芽尖的激酶适配器[17](图四C和F)。Vam6与Mob2的相互作用通过免疫共沉淀得到证实(图四G)。使用温度敏感型突变体mob2ts导致Vam6的迁移发生变化且水平下降(图四H和I),表明Mob2对Vam6的翻译后修饰及其稳定性是必需的。短暂热激后,mob2ts消除了母细胞与子细胞之间的Vam6不对称性(图四J),以及显著消除了液泡酸化的不对称性,而不影响液泡继承(图四K和L)。
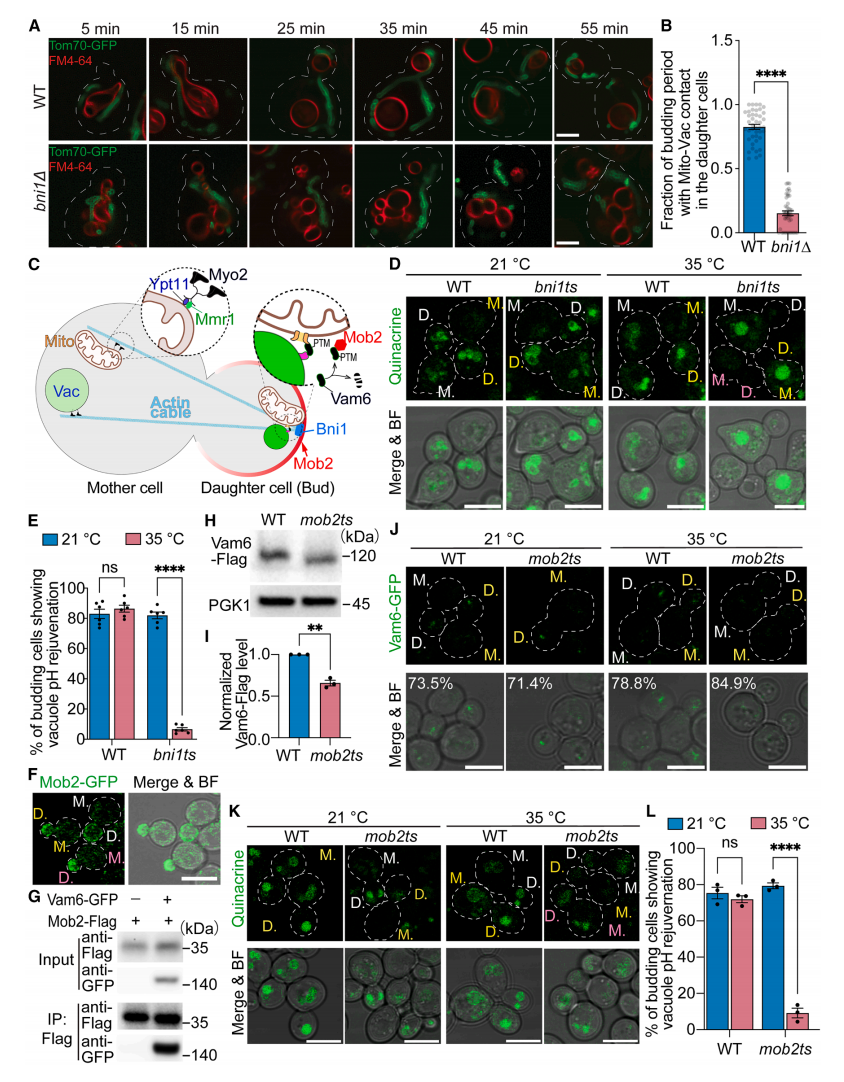
图四 线粒体-液泡接触有助于子细胞液泡的重新酸化[11]
鉴于溶酶体/液泡酸化机制以及与线粒体接触在进化上高度保守[18],研究者推测线粒体-溶酶体接触在人类细胞的溶酶体酸化可能发挥类似功能。研究者使用先前开发用于报告溶酶体酸化的pHLARE,将大鼠溶酶体跨膜蛋白LAMP1的腔内侧融合了酸敏感性sfGFP,胞质侧融合了mCherry,当pH较低时显示为较低的sfGFP/mCh比率。将pHLARE稳定表达于HeLa细胞,同时用MitoTracker Deep Red监测线粒体(图五A)。结果显示,与线粒体稳定接触的溶酶体(On)sfGFP/mCh比率低,显著更酸;而远离(Off)的酸性更弱(图五B-D,F)。部分溶酶体的酸化状态与其线粒体接触并无相关性,这可能是由于线粒体-溶酶体接触的动态性所致[18]。于是,研究者进一步构建了Tet-On诱导同时表达Tom20tm-mCh纳米抗体和pHLARE的Mito-Lyso连接子(图五A)。结果显示,Tet-On诱导Mito-Lyso连接子表达后,线粒体-溶酶体距离显著缩短,并减缓了溶酶体运动(图五B-E)。这种增强的相互作用伴随着Mito-Lyso距离与溶酶体酸化之间更强的相关性,以及溶酶体酸化的增强(图五D, F和G)。
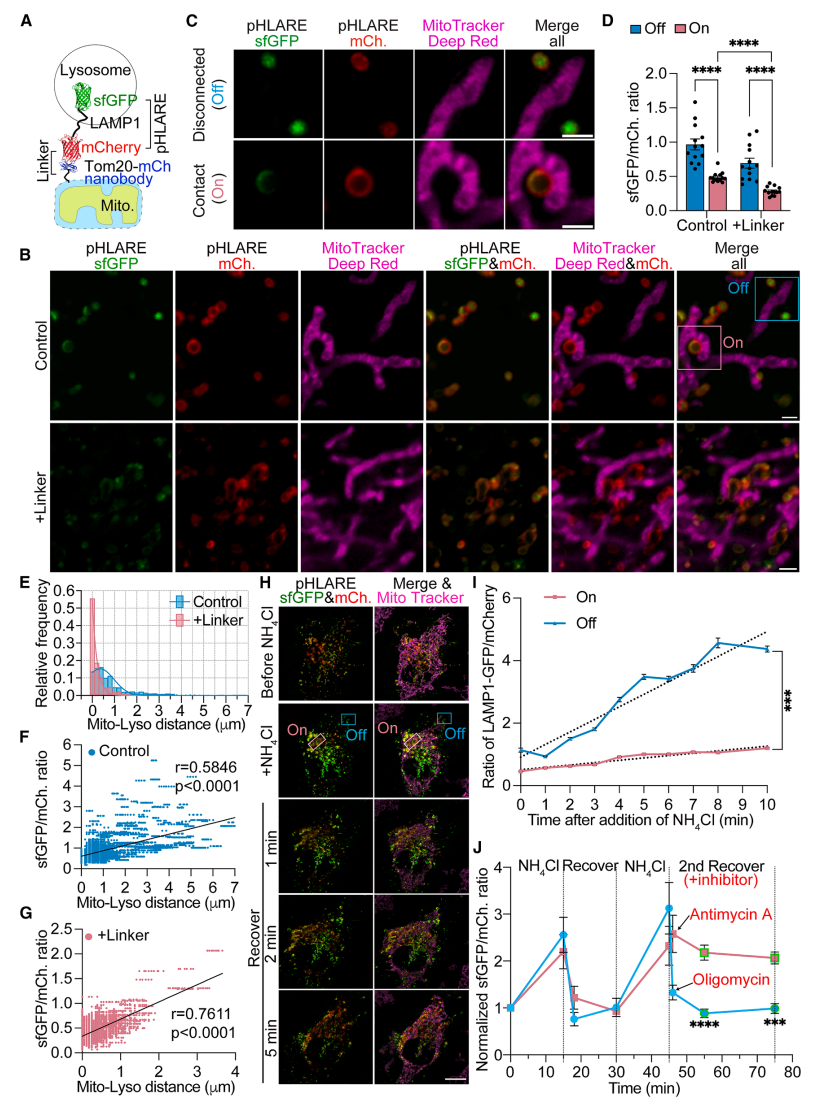
图五 线粒体-溶酶体接触促进人类细胞的溶酶体酸化[11]
研究者采用氯化铵(NH4Cl)瞬时中和HeLa细胞的溶酶体,洗脱后监测再酸化过程。为了追踪单个溶酶体,研究者引入了低浓度的微管抑制剂诺考达唑以限制溶酶体的运动和混合。结果显示,加入NH4Cl后,大多数溶酶体立即被中和,表现为sfGFP/mCh比率升高(图五H);与附着于线粒体的溶酶体(On)相比,远离线粒体的溶酶体(Off)酸化丧失更快更显著(图五H和I)。在NH4Cl洗脱后,溶酶体在2-5分钟内迅速再酸化。当细胞完全恢复后,重复NH4Cl中和并用抑制剂测试溶酶体再酸化。在抗霉素A存在的情况下,再酸化立即被阻断(图五J)。以上实验结果表明,溶酶体再酸化严格依赖线粒体接触和ETC活性。最后,研究者还实验证明,人类衰老细胞中线粒体-溶酶体接触的减少会导致溶酶体酸化缺陷和衰老相关表型。
综上所述,该研究揭示了一种人类细胞和酵母中进化保守机制:在线粒体与溶酶体/液泡之间可通过细胞器的膜接触位点拉近二者的距离,使得由线粒体电子传递链(ETC)泵出的质子,被溶酶体/液泡的 V-ATPase快速捕获并用于酸化,对于维持细胞器的功能至关重要。在衰老过程中,这种线粒体-溶酶体/液泡接触的逐渐丧失会导致酸化受损,通过人工设计的连接子恢复二者的接触则可改善酸化,且抑制衰老相关表型,并延长酵母复制性寿命。该研究揭示了细胞器间的接触位点、细胞内的质子动态平衡对于细胞器稳态维持的关键作用,拓宽了溶酶体/液泡的酸化机制及其对衰老/再生的影响,为延缓衰老和治疗溶酶体相关疾病提供了全新的思路。
GTP研发中心负责实施基因组标签计划(Genome tagging project, GTP),基于自主知识产权的类精子干细胞介导半克隆技术,为全基因组的功能基因一一贴上标签,致力于构建标签细胞和标签小鼠资源库。类精子干细胞是从精子来源单倍体囊胚中建系获得的一种孤雄单倍体胚胎干细胞,将其注入卵母细胞,能够像精子一样支持整个胚胎发育过程,产生健康的半克隆小鼠。GTP研发中心在类精子干细胞的蛋白质编码基因上原位敲入标签序列,建立了液氮保存的标签细胞资源库。研究需要时,利用半克隆技术将标签细胞注射到小鼠卵母细胞中,一步法获得标签小鼠。
已有标签产品可直接订购,详情查阅以下官网链接。如有需要欢迎联系,我们将竭诚为您服务。
标签细胞网址:
标签小鼠网址:
http://www.sibcb.ac.cn/gtp/msearch.jsp
地址:上海市岳阳路320号
责任编辑:甜点
新媒体运营:suway
参考文献
1. Freeman SA, Grinstein S, Orlowski J: Determinants, maintenance, and function of organellar pH. Physiol Rev 2023, 103(1):515-606.
2. Hu Y, Carraro-Lacroix LR, Wang A, Owen C, Bajenova E, Corey PN, Brumell JH, Voronov I: Lysosomal pH Plays a Key Role in Regulation of mTOR Activity in Osteoclasts. J Cell Biochem 2016, 117(2):413-425.
3. Li SC, Kane PM: The yeast lysosome-like vacuole: endpoint and crossroads. Biochim Biophys Acta 2009, 1793(4):650-663.
4. Yim WW, Mizushima N: Lysosome biology in autophagy. Cell Discov 2020, 6:6.
5. Orij R, Brul S, Smits GJ: Intracellular pH is a tightly controlled signal in yeast. Biochim Biophys Acta 2011, 1810(10):933-944.
6. Spinelli JB, Haigis MC: The multifaceted contributions of mitochondria to cellular metabolism. Nat Cell Biol 2018, 20(7):745-754.
7. Perktold A, Zechmann B, Daum G, Zellnig G: Organelle association visualized by three-dimensional ultrastructural imaging of the yeast cell. FEMS Yeast Res 2007, 7(4):629-638.
8. van Eunen K, Bouwman J, Daran-Lapujade P, Postmus J, Canelas AB, Mensonides FI, Orij R, Tuzun I, van den Brink J, Smits GJ et al: Measuring enzyme activities under standardized in vivo-like conditions for systems biology. FEBS J 2010, 277(3):749-760.
9. Burgstaller S, Bischof H, Gensch T, Stryeck S, Gottschalk B, Ramadani-Muja J, Eroglu E, Rost R, Balfanz S, Baumann A et al: pH-Lemon, a Fluorescent Protein-Based pH Reporter for Acidic Compartments. ACS Sens 2019, 4(4):883-891.
10. Hughes AL, Gottschling DE: An early age increase in vacuolar pH limits mitochondrial function and lifespan in yeast. Nature 2012, 492(7428):261-265.
11. Liu Q, Yoo S, Zhang ZA, Li L, Su H, Vannur L, Wooldredge AC, Hughes JB, Desprez PY, Hao N et al: Mitochondria-lysosome coupling contributes to lysosome acidification and aging. Mol Cell 2026, 86(12):2425-2442 e2410.
12. Serrano R: Energy requirements for maltose transport in yeast. Eur J Biochem 1977, 80(1):97-102.
13. Wong YC, Ysselstein D, Krainc D: Mitochondria-lysosome contacts regulate mitochondrial fission via RAB7 GTP hydrolysis. Nature 2018, 554(7692):382-386.
14. Hönscher C, Mari M, Auffarth K, Bohnert M, Griffith J, Geerts W, van der Laan M, Cabrera M, Reggiori F, Ungermann C: Cellular metabolism regulates contact sites between vacuoles and mitochondria. Developmental cell 2014, 30(1):86-94.
15. Bi E, Park HO: Cell polarization and cytokinesis in budding yeast. Genetics 2012, 191(2):347-387.
16. Sagot I, Klee SK, Pellman D: Yeast formins regulate cell polarity by controlling the assembly of actin cables. Nat Cell Biol 2002, 4(1):42-50.
17. Weiss EL, Kurischko C, Zhang C, Shokat K, Drubin DG, Luca FC: The Saccharomyces cerevisiae Mob2p-Cbk1p kinase complex promotes polarized growth and acts with the mitotic exit network to facilitate daughter cell-specific localization of Ace2p transcription factor. J Cell Biol 2002, 158(5):885-900.
18. Wong YC, Kim S, Peng W, Krainc D: Regulation and Function of Mitochondria-Lysosome Membrane Contact Sites in Cellular Homeostasis. Trends Cell Biol 2019, 29(6):500-513.
转载请注明来源于【GTP研发中心】
声明:本文仅用于分享,不代表GTP研发中心立场,若有侵权,请及时联系我们第一时间更正!